抽象的#
肿瘤周围脂肪组织(PAT)是癌症治疗耐药的关键因素,但其在调控铁死亡中的作用尚不明确。本研究表明,PAT 通过上调铁蛋白(FTH1/FTL)并螯合细胞内铁,赋予癌细胞铁死亡抵抗力。PAT 衍生的犬尿氨酸(KYN)被鉴定为主要介质。KYN 被癌细胞摄取并代谢为 3-羟基犬尿氨酸,后者直接与核受体共激活因子 4(NCOA4)结合。这种相互作用抑制了 NCOA4 介导的铁蛋白自噬,从而阻止铁蛋白降解并限制铁死亡所需的游离铁池。在小鼠模型中,KYN 通路药物抑制与 PD-1 阻断剂协同作用,克服了铁死亡抵抗并抑制了肿瘤进展。这些发现揭示了 PAT–KYN–铁蛋白自噬轴促进铁死亡抵抗,突显了靶向脂肪-肿瘤交叉对话以增强 PAT 相关肿瘤免疫疗法的潜力。
主要的#
肿瘤微环境(TME)受邻近基质成分的动态调控 1 。其中,肿瘤周围脂肪组织(PAT)在解剖学上与多种恶性肿瘤相关,包括乳腺癌、肾细胞癌以及胃癌(GC)、结直肠癌(CRC)和卵巢癌等腹部肿瘤 [^2] 。临床上,PAT 与多种癌症的不良预后相关 3 ,并且是 CRC 无复发生存期的独立预测因子 4 。脂肪细胞通过代谢偶联促进肿瘤增殖,主要通过提供游离脂肪酸和乳酸来为肿瘤细胞代谢提供能量 5,6,7 。同时,脂肪细胞还会上调癌细胞中的 CD36 以增强游离脂肪酸的摄取,并分泌脂肪因子以促进侵袭和迁移 8,9 。尽管取得了这些进展,但 PAT 驱动肿瘤进展和治疗耐药的确切机制仍未完全阐明。
铁死亡是一种受调控的细胞死亡,由铁依赖性脂质过氧化驱动,细胞内铁对其敏感性至关重要 [^10] 。铁蛋白由铁蛋白重链(FTH1)和铁蛋白轻链(FTL)亚基组成,通过螯合或释放 Fe 2+ 来维持铁稳态(参考文献 [^11] )。这一过程通过铁蛋白自噬与铁死亡相关,在铁蛋白自噬过程中,核受体共激活因子 4(NCOA4)结合铁蛋白并将其降解,从而释放储存的铁,促进脂质过氧化 [^12] 。先前的研究表明,溶酶体铁的激活和扩散会启动膜脂氧化和铁死亡 13,14 ,并且有证据表明铁蛋白自噬与辐射诱导的铁死亡相关 15 ,从而凸显了其在调控铁死亡中的关键作用。相反,抑制铁蛋白自噬会损害铁的释放并赋予细胞铁死亡抵抗力 16,17 。药理学上破坏 NCOA4-FTH1 相互作用会降低亚铁离子水平和铁死亡敏感性 18 。越来越多的证据表明,铁死亡是一种独特的免疫原性细胞死亡形式,它在 CD8 + T 细胞介导的抗肿瘤免疫和免疫疗法中起着至关重要的调控作用 19,20 。我们之前的研究也表明,肿瘤微环境(TME)中的白细胞介素-1β通过维持铁稳态来保护肿瘤细胞免受铁死亡的影响 21 。然而,PAT 在调节铁死亡中的作用仍不清楚。
本研究旨在阐明 PAT 在调控癌细胞铁死亡敏感性中的作用。我们发现 PAT 可提高癌细胞中 3-羟基犬尿氨酸(3-HK)的水平,3-HK 可直接结合 NCOA4,抑制铁蛋白自噬,从而赋予癌细胞铁死亡抵抗力。此外,抑制犬尿氨酸(KYN)通路与抗 PD-1 疗法协同作用,可在富含脂肪组织的肿瘤模型中实现显著的肿瘤清除。本研究揭示了 PAT 驱动的铁死亡抵抗代谢机制,并提出了一种双靶点策略,即抑制 KYN 通路与免疫检查点阻断(ICB)相结合,以增强 PAT 相关肿瘤的免疫治疗效果。
结果#
PAT 赋予肿瘤细胞铁死亡抵抗力,并降低免疫疗法的疗效。#
在晚期结直肠癌(CRC)和胃癌(GC)中,肿瘤常侵入浆膜层并直接接触内脏脂肪组织(图 1a )。为了研究腹腔脂肪组织(PAT)是否影响铁死亡,我们建立了两种体内模型,将 CRC 肿瘤分别植入背部中段皮下区域(非脂肪组织部位)或腹股沟白色脂肪组织(iWAT,脂肪组织相关部位),如先前报道 [^22] 所述(图 1b )。首先,我们利用强力霉素诱导的关键铁死亡抑制因子谷胱甘肽过氧化物酶 4(GPX4-iKD) [^23] 敲低方法,发现植入 iWAT 的 DLD1 异种移植瘤比皮下肿瘤更耐受铁死亡(图 1c、d 和扩展数据图 1a-c )。免疫组织化学 (IHC) 证实,GPX4 沉默后,iWAT 相关肿瘤中的脂质过氧化(4-羟基壬烯醛 (4-HNE) 和丙二醛 (MDA))水平降低(图 1e 和扩展数据图 1d )。在 MC38 肿瘤中,胱氨酸转运蛋白 SLC7A11 的诱导性敲低也观察到了类似的耐药性 [^24] (扩展数据图 1e–g )。
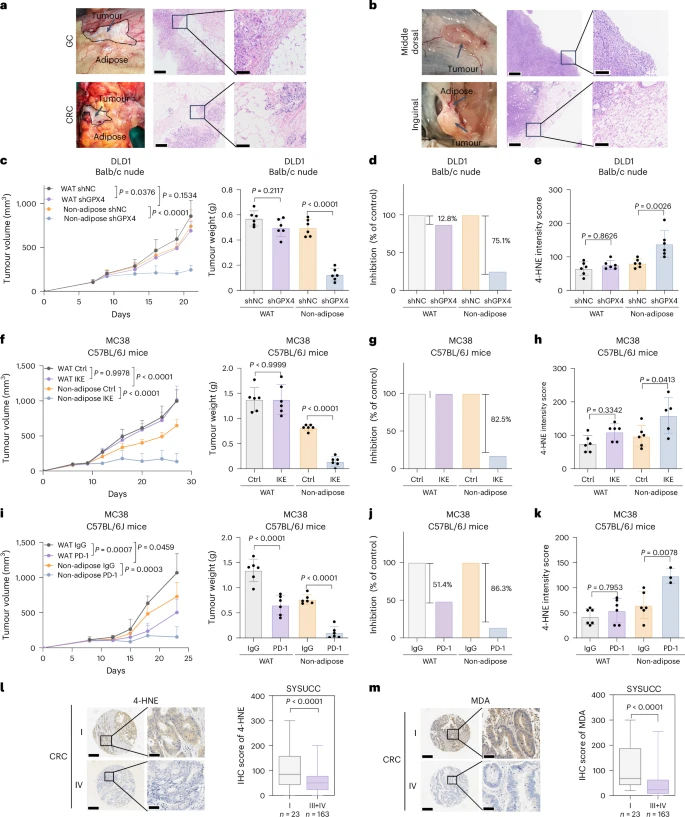
图 1:PAT 赋予肿瘤铁死亡抵抗力并降低免疫疗法疗效。
为了验证 PAT 介导的铁死亡抵抗的普遍性,我们随后评估了肿瘤在药理学和免疫学应激下的反应。在携带 MC38 肿瘤的 C57BL/6J 小鼠中,iWAT 植入的肿瘤对铁死亡诱导剂咪唑酮 erastin (IKE) 的敏感性显著降低,肿瘤生长抑制率从皮下植入的 82.5%下降到 PAT 相关肿瘤的 0.24%(图 1f、g 和扩展数据图 1i )。这种 IKE 效应被证实为铁死亡依赖性的,因为在皮下肿瘤中,Liproxstatin-1 (Lip-1) 可以逆转这种效应(扩展数据图 1h )。相应地,免疫组化结果显示,IKE 处理的 iWAT 肿瘤中脂质过氧化作用减弱(图 1h 和扩展数据图 1j )。有趣的是,PAT 仅在免疫功能正常的 C57BL/6J 小鼠中促进肿瘤生长,而在免疫缺陷的 BALB/c 裸鼠中则无此作用(图 1c,f )。CD8 + T 细胞耗竭后,这种促肿瘤作用消失(扩展数据图 2a,b )。与此一致的是,在 Rag1 - / - 小鼠中,非脂肪组织和 iWAT 部位的肿瘤生长相似,但过继转移 CD8 + T 细胞可选择性地抑制非脂肪组织部位的肿瘤生长(扩展数据图 2c,d )。因此,PAT 可保护肿瘤免受外源性铁死亡诱导剂和内源性 CD8 + T 细胞介导的铁死亡应激的影响。
鉴于 CD8 + T 细胞来源的干扰素-γ在免疫检查点阻断治疗(ICB)期间可增强肿瘤细胞对铁死亡的敏感性,我们还比较了不同植入部位的抗 PD-1 疗法的疗效。与我们之前的观察结果一致,与皮下肿瘤相比,iWAT 植入的 CRC 肿瘤对抗 PD-1 治疗的反应降低(图 1i、j 和扩展数据图 2e ),同时伴有脂质过氧化作用减弱(图 1k 和扩展数据图 2f )。与浆膜浸润性肿瘤的脂肪组织嵌入状态一致,与解剖学上与脂肪组织隔室分离的 I 期肿瘤相比,III-IV 期肿瘤中的脂质过氧化信号(4-HNE/MDA)显著减弱(图 1l、m 和扩展数据图 2g、h )。总的来说,这些结果表明 PAT 赋予癌细胞对铁死亡的抵抗力,从而损害抗肿瘤免疫并降低免疫检查点疗法的疗效。
PAT 通过铁蛋白介导的铁螯合赋予肿瘤细胞铁死亡抵抗力#
由于 PAT 介导肿瘤细胞的铁死亡抵抗,我们推测 PAT 分泌保护因子。为了验证这一假设,我们建立了脂肪来源条件培养基(脂肪-CM)检测方法进行体外验证(图 2a )。脂肪-CM 显著减弱了 RAS 选择性致死因子 3(RSL-3)诱导的人 CRC 细胞(图 2b、c 和扩展数据图 3a )和小鼠 MC38 细胞(扩展数据图 3b、c )中的脂质过氧化和铁死亡。尽管维生素 E 和线粒体外辅酶 Q10(CoQ10)等抗氧化剂可以抑制铁死亡 25,26 ,但它们在脂肪相关肿瘤中的水平并未改变(扩展数据图 3d、e )。为了系统地阐明 PAT 促进铁死亡抵抗的机制,我们进行了定量蛋白质组学分析,发现与对照组相比,用脂肪条件培养基(adipose-CM)培养的肿瘤细胞表现出独特的蛋白质组学特征(图 2d 和补充表 1 )。值得注意的是,在脂肪条件培养基处理的细胞中,FTH1 和 FTL 均显著上调(图 2e ),而其他核心铁死亡调节因子保持不变(扩展数据图 3f )。免疫印迹实验证实了 FTH1/FTL 的选择性诱导,而其他铁相关蛋白(图 2f )或细胞内谷胱甘肽(GSH)水平(扩展数据图 3g )并未发生改变,表明这是一种以铁蛋白上调为中心的 GSH 非依赖性机制。

图 2:PAT 通过铁蛋白介导的铁螯合赋予肿瘤细胞铁死亡抵抗力。
铁蛋白通常会因补铁而上调。然而,FerroOrange 染色显示,脂肪条件培养基(faipose-CM)处理的细胞内 Fe²⁺ 水平降低(图 2g 和扩展数据图 3h ),表明铁蛋白的增加并非由于铁的积累。FTH1 和 FTL 的双重敲低减弱了这种 Fe²⁺的 消耗,并消除了脂肪条件培养基对 DLD1 和 HCT116 细胞中 RSL-3 诱导的铁死亡的保护作用(图 2h-j 和扩展数据图 3i-l ),表明铁蛋白对于脂肪条件培养基介导的细胞保护作用至关重要。
为了在体内验证这一结果,我们建立了 mCherry 标记的 MC38 肿瘤模型,并进行了后续分析(扩展数据图 3m )。与皮下肿瘤相比,来自脂肪丰富的腹股沟部位的 MC38 肿瘤细胞表现出更高的 FTH1/FTL 表达、更低的细胞内 Fe²⁺ 水平、更低的脂质过氧化水平和更强的铁死亡抵抗力(图 2k-n )。腹膜是脂肪丰富的微环境,也是胃肠道转移的常见部位 27,28 。因此,我们通过将 MC38 细胞腹腔注射到 C57BL/6J 小鼠体内,建立了腹膜肿瘤模型。这些肿瘤的 FTH1/FTL 表达高于皮下肿瘤(图 2o )。值得注意的是,FTH1/FTL 基因敲低抑制了腹膜肿瘤的进展,表现为肿瘤体积和负荷的降低(图 2p,q ),证实了该通路在促进腹膜转移中的病理生理学意义。综上所述,这些结果表明 PAT 通过上调铁蛋白螯合细胞内铁来赋予细胞铁死亡抵抗力。
PAT 建立富含犬尿氨酸的肿瘤微环境,从而提高癌细胞中的铁蛋白水平。#
基于 PAT 来源因子诱导铁蛋白介导的铁螯合的证据,我们进一步鉴定了导致此效应的成分。脂肪条件培养基(adipose-CM)上调 FTH1/FTL 的活性具有热稳定性,且在 3 kDa 滤膜过滤后仍然存在(图 3a ),表明低分子量代谢物是活性因子。铁蛋白亚基随脂肪条件培养基稀释而减少,证实了浓缩代谢物的诱导作用(扩展数据图 3n )。代谢组学分析发现,在脂肪条件培养基和 iWAT 移植的 MC38 肿瘤中,KYN 是唯一持续升高的代谢物(图 3b 和补充表 2 )。值得注意的是,CRC 患者和荷 MC38 肿瘤小鼠的 PAT 条件培养基中分别含有 124 μM 和 97 μM 的 KYN(补充表 3 )。正如预期的那样,KYN 剂量依赖性地增加了 FTH1/FTL,降低了细胞内 Fe 2+ ,并抑制了 RSL-3 诱导的癌细胞脂质过氧化和铁死亡(图 3c–f )。

图 3:PAT 建立富含 KYN 的 TME 以提高癌细胞中的铁蛋白。
犬尿氨酸 (KYN) 是色氨酸 (TRP) 的一种代谢产物,其生成受吲哚胺 2,3-双加氧酶 1 (IDO1)/色氨酸 2,3-双加氧酶 2 (TDO2) 的限制 [^29]
为了确定犬尿氨酸(KYN)的分泌是 PAT 特有的还是所有脂肪组织特有的,我们比较了 MC38 荷瘤小鼠的 PAT 与对侧 iWAT(正常白色脂肪组织,WAT),并分析了两种组织样本及其相应的条件培养基。结果显示,PAT 组织及其条件培养基中的 KYN 水平显著升高(图 3n,o ),证实了肿瘤邻近微环境中 KYN 的特异性产生增强。为了鉴定 KYN 的细胞来源,我们对 MC38 iWAT 肿瘤的 PAT 进行了单核 RNA 测序(snRNA-seq)。结果显示,Ido1 在脂肪细胞中高表达,而 Tdo2 在脂肪前体细胞(pACs)和脂肪来源干细胞(ASCs)中高表达(图 3p,q 和补充表 4 )。由于脂肪细胞、pACs 和 ASCs 共占 PAT 细胞总量的 54.8%(分别为 36%、14.8% 和 4%),我们得出结论,它们是 KYN 产生的主要贡献者。这些发现表明,PAT 建立了一个富含 KYN 的肿瘤微环境 (TME),从而驱动铁蛋白上调、铁螯合和铁死亡抵抗。总而言之,这些发现表明,PAT 通过建立富含 KYN 的 TME 赋予肿瘤细胞铁死亡抵抗力,该 TME 通过促进铁螯合和上调铁蛋白来抑制铁死亡。
KYN 衍生的 3-HK 是 PAT 介导的肿瘤铁死亡抵抗的原因。#
KYN 会被癌细胞吸收并代谢为下游产物 [^33] (扩展数据图 4a )。为了确定 KYN 或其代谢产物是否直接调控铁蛋白,我们系统地检测了 TRP-KYN 通路的中间体。其中,KYN、3-HK 和 3-羟基邻氨基苯甲酸 (3-HAA) 被发现能够赋予癌细胞铁死亡抵抗力(扩展数据图 4b ),值得注意的是,它们是两个酶促步骤的连续产物。为了进一步揭示它们的作用,我们通过基因手段抑制了这些代谢步骤。在添加 KYN 的培养基中,敲低将 KYN 转化为 3-HK 的 KYN 单加氧酶 (KMO) 会降低 FTH1/FTL 比值,增加 Fe 2+ 水平,增强脂质过氧化作用,并使细胞对铁死亡更加敏感(图 4a-d 和扩展数据图 4c-f )。相反,抑制犬尿氨酸酶(KYNU,可将 3-HK 转化为 3-HAA)会增强 KYN 的作用,进一步提高 FTH1/FTL 比值,降低 Fe²⁺ 和脂质过氧化水平,并保护细胞免于死亡(图 4e-h 和扩展数据图 4g-j )。这些相反的结果强烈表明,3-HK 是驱动铁蛋白积累的关键代谢物。
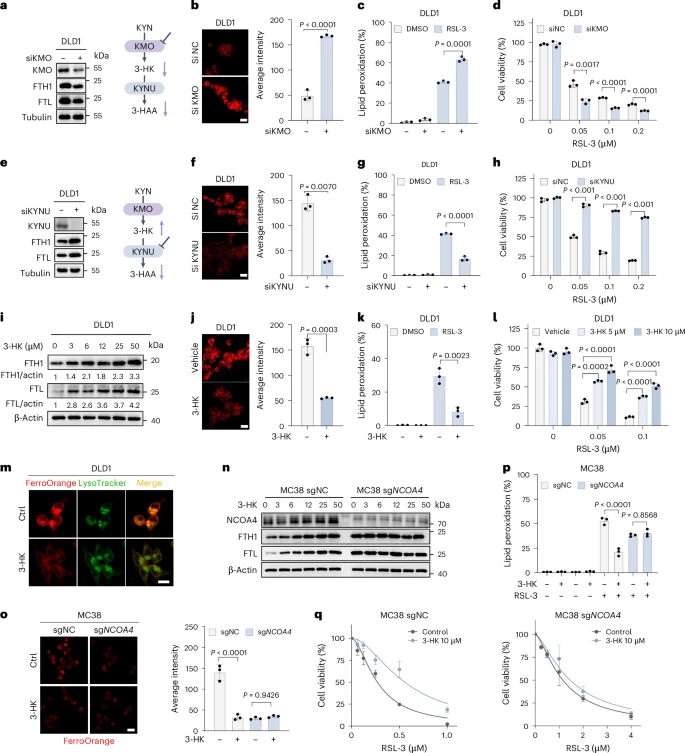
图 4:KYN 衍生的 3-HK 是 PAT 介导的肿瘤铁死亡抵抗的原因。
持续补充 3-HK 可剂量依赖性地上调 FTH1/FTL 的表达,降低活性铁水平,抑制脂质过氧化,并增强铁死亡抵抗力(图 4i-l 和扩展数据图 4k-n )。接下来,我们探究 3-HK 调控铁蛋白的机制。由于 3-HK 和 KYN 均不影响 FTH1/FTL mRNA 的表达(扩展数据图 5a ),我们研究了其是否受翻译后调控。脉冲追踪实验表明,3-HK 延缓了 FTH1 的降解,提示其通过抑制铁蛋白的分解来稳定铁蛋白(扩展数据图 5b )。由于铁蛋白是通过 NCOA4 介导的铁蛋白自噬作用降解的 [^34] ,我们推测 3-HK 通过抑制该过程来稳定铁蛋白。事实上,3-HK 处理降低了癌细胞中溶酶体 Fe²⁺ 的含量(图 4m )。此外,在 NCOA4 敲除 (KO) 细胞中,3-HK 和 KYN 均未能上调铁蛋白并降低细胞内 Fe²⁺ 含量(图 4n、o 和扩展数据图 5c、d )。与对照组相比,3-HK 对 RSL-3 的保护作用在 NCOA4 KO 细胞中也减弱(图 4p、q ),证实 NCOA4 对 3-HK 的功能至关重要。值得注意的是,低剂量 3-HK (2.5 μM) 预处理可显著保护 MC38 和 DLD1 对照细胞免于铁死亡。相比之下,在 NCOA4-KO MC38 细胞和 FTH1-KO DLD1 细胞中,低浓度的 3-HK 未能提供保护作用,仅在高浓度(≥20 μM)下观察到部分恢复作用(扩展数据图 5e,f )。这种高浓度下的部分恢复作用可能归因于 3-HK 的自由基清除抗氧化(RTA)活性。 值得注意的是,即使在高浓度下,3-HK 对铁死亡的保护作用在对照细胞中仍然强于在 NCOA4-KO 或 FTH1-KO 细胞中(扩展数据图 5e,f )。与此一致的是,KYN 和 3-HK 在低浓度下均仅表现出轻微的 RTA 活性(扩展数据图 5h )。这些结果表明,在低浓度下,3-HK 的抗铁死亡作用主要依赖于铁蛋白介导的铁代谢调节;而在高浓度下,3-HK 的抗铁死亡作用则源于铁蛋白自噬抑制和 RTA 活性的共同作用。
我们进一步研究了芳烃受体 (AHR) 的参与情况,AHR 是色氨酸 (TRP) 代谢物的主要靶点。结果发现,AHR 敲除 (KO) 并未影响 3-己糖胺 (3-HK) 介导的 FTH1/FTL 上调(扩展数据图 5i ),从而排除了 AHR 的参与。既往研究报道,犬尿氨酸 (KYN) 通路的代谢物可通过激活 NRF2/SLC7A11 抗氧化轴或在高浓度 (50–200 μM) 下直接清除自由基来抵抗铁死亡 [^31] [^35] 。然而,我们发现低剂量 3-HK (5 μM) 可在不改变 SLC7A11 表达的情况下上调 FTH1/FTL 蛋白水平,并且即使在 NRF2 和 SLC7A11 敲除细胞中,其诱导 FTH1/FTL 的能力依然存在(扩展数据图 5j–l ),这表明其作用机制独立于经典的抗氧化通路。此外,3-HK 介导的 FTH1/FTL 上调与 CD44 介导的铁摄取无关(扩展数据图 5m,n )。综上所述,这些发现揭示了一条代谢物驱动的通路,其中 PAT 衍生的 KYN 在肿瘤细胞内转化为 3-HK,导致 NCOA4 介导的铁蛋白降解受到抑制,铁生物利用度降低,并增强了铁死亡抵抗力。
3-HK 直接结合 NCOA4 并阻断铁蛋白自噬的启动#
为了进一步阐明 3-HK 如何调控铁蛋白自噬,我们研究了其对 NCOA4 和 FTH1 相互作用的影响,这是启动铁蛋白自噬的关键步骤 12 。免疫荧光(IF)分析显示,3-HK 或 KYN 处理显著降低了肿瘤细胞中 FTH1 和 NCOA4 的共定位(图 5a 和扩展数据图 6a )。与此一致,免疫沉淀(IP)实验表明,3-HK 减弱了 FTH1 和 NCOA4 之间的结合(图 5b 和扩展数据图 6b )。值得注意的是,KYNU 敲低同样降低了 FTH1 和 NCOA4 之间的结合,而 KMO 敲低则产生了相反的效果(图 5c )。此外,我们纯化了全长 NCOA4(NCOA4-fl)和铁蛋白结合域(命名为 NCOA4 383–522 ),并进行了体外下拉实验 36 。结果表明,3-HK 特异性抑制了 FTH1 与 NCOA4 的直接结合,而 KYN 及其下游代谢物 3-HAA 均未表现出此作用(图 5d,e )。此外,热变性实验表明,3-HK 以剂量依赖的方式稳定 NCOA4,使其免受热变性(图 5f ),提示 3-HK 与 NCOA4 之间存在直接的物理相互作用。正如预期,免疫荧光分析显示,生物素标记的 3-HK 与 NCOA4 在肿瘤细胞中存在共定位(扩展数据图 6c )。此外,我们的链霉亲和素下拉和 Duolink 邻近连接分析 (PLA) 揭示了 3-HK 和 NCOA4 之间的相互作用(图 5g–i )。 我们利用表面等离子共振(SPR)和生物层干涉(BLI)技术,进一步表征了 3-HK 与 NCOA4 的直接相互作用,所用样品包括 NCOA4-fl 和 NCOA4 383–522 。结果表明,3-HK 可直接结合 NCOA4 383–522 和 NCOA4-fl,其解离常数分别约为 0.8 μM 和 0.5 μM(图 5j 和扩展数据图 6d–f )。相比之下,KYN 和 3-HAA 均未检测到与 NCOA4 的结合(图 5k,l )。综上所述,这些结果表明 3-HK 可直接结合 NCOA4,破坏其与 FTH1 的相互作用,从而抑制铁蛋白自噬。

图 5:3-HK 直接结合 NCOA4 并阻断铁蛋白自噬的启动。
靶向犬尿氨酸(KYN)生物合成可增强 PAT 相关肿瘤对铁死亡和免疫疗法的敏感性。#
基于我们观察到的 PAT 中 IDO1/TDO2 表达上调,我们假设药理学抑制 IDO1/TDO2 可降低局部 KYN 水平,进而降低肿瘤内 3-HK 和铁蛋白水平。相应地,使用 IDO/TDO 抑制剂(epacadostat 和 LM10)治疗显著降低了 PAT 中的 KYN 水平和肿瘤中的 3-HK 水平(扩展数据图 7a、b )。免疫印迹实验证实 FTH1、FTL 和 NCOA4 的表达相应下调,这与铁蛋白自噬增强相一致(扩展数据图 7c )。因此,体内抑制 KYN 通路可有效破坏肿瘤中的铁蛋白积累轴。
接下来,我们评估了靶向 IDO1/TDO2 克服铁死亡抵抗的治疗潜力。在植入 iWAT 的 CT26 肿瘤的 BALB/c 小鼠中,IDO1/TDO2 抑制剂增强了 GPX4 敲低诱导的铁死亡(图 6a、b 和扩展数据图 7d )。在裸鼠的 DLD1 异种移植瘤中也观察到了类似的增敏作用(图 6c、d 和扩展数据图 7e )。在邻近 iWAT 的 CRC 患者来源异种移植 (PDX) 模型中,IDO1/TDO2 抑制也使肿瘤对铁死亡诱导剂 IKE 敏感(图 6e、f 和扩展数据图 7f ),这种协同效应在携带 MC38 肿瘤的免疫功能正常的 C57BL/6J 小鼠中得到了进一步证实(图 6g、h 和扩展数据图 7g )。

图 6:靶向 KYN 生物合成可使 PAT 相关肿瘤对铁死亡和免疫疗法敏感。
由于抗 PD-1 疗法可促进 CD8 + T 细胞介导的铁死亡 [^37] ,我们假设 IDO1/TDO2 抑制剂可增强 PAT 相关肿瘤对抗 PD-1 治疗的敏感性。事实上,虽然抗 PD-1 单药治疗对 iWAT 移植瘤的疗效有限,但 IDO1/TDO2 抑制剂与抗 PD-1 抗体的联合应用可进一步增强肿瘤抑制作用。值得注意的是,Lip-1 可逆转这种增强的抑制作用,证实了铁死亡的参与(图 6i、j 和扩展数据图 7h )。该联合疗法的益处也在腹膜转移模型中得到验证(图 6k-m 和扩展数据图 7i、j )。因此,靶向 IDO1/TDO2 有望成为克服铁死亡耐药性并增强富含 PAT 肿瘤免疫疗法疗效的有效策略。
PAT 相关的铁蛋白调节轴与恶性肿瘤和免疫检查点抑制剂(ICB)疗效相关。#
为了从临床上验证 PAT-铁蛋白轴,我们分析了伴有腹膜转移的胃癌患者的横断面影像数据。与原发肿瘤相比,腹膜病灶对新辅助化疗-免疫疗法的反应较差(图 7a,b )。在另一队列中,对配对组织标本进行免疫组化分析显示,与原发肿瘤部位相比,腹膜转移灶中 FTH1 和 FTL 的表达显著升高,而脂质过氧化标志物 4-HNE 的水平降低(图 7c,d )。此外,KMO 高表达 /KYNU 低 表达的特征(反映 3-HK 升高)与结直肠癌和胃癌的晚期和较差的生存率相关(图 7e,f )。这些结果表明,该轴的激活(图 7g )会导致富含 PAT 的癌症产生治疗耐药性,并可能作为免疫治疗疗效的预测性生物标志物。
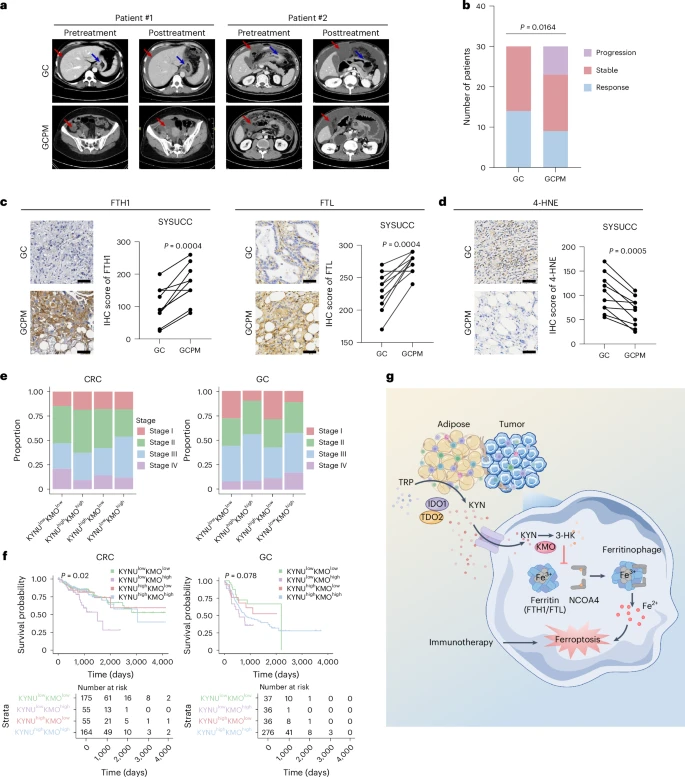
图 7:PAT 相关铁蛋白调节轴与恶性肿瘤和 ICB 反应相关。
讨论#
脂肪组织在人体内含量丰富,分布于多个部位 [^38] 。临床上,在包括结直肠癌(CRC)、胃癌(GC)、肾细胞癌和腹腔内转移瘤在内的多种恶性肿瘤周围,常观察到周围脂肪组织增生(PAT) 22, 27, 39 ,且与肥胖无关。肥胖目前被认为是一种与代谢紊乱相关的低度慢性炎症状态。已知脂肪细胞通过提供脂肪酸、代谢偶联和分泌脂肪因子来支持肿瘤生长 22, 40, 41 。本研究表明,PAT 通过抑制铁蛋白自噬来抑制肿瘤铁死亡并赋予其免疫抵抗力。我们发现 3-己糖胺(3-HK)是连接犬尿氨酸(KYN)代谢和铁稳态的代谢物,并证实同时抑制 IDO1 和 TDO2 可恢复 PAT 相关肿瘤的铁死亡敏感性,并提高免疫检查点阻断疗法的疗效。
PAT 调控铁死亡的机制尚不明确,既往研究显示其对脂肪细胞的影响存在矛盾 28,42 。本研究发现,PAT 可提高肿瘤微环境(TME)中 L-犬尿氨酸(L-KYN)的水平,进而导致其下游代谢产物 3-己糖胺(3-HK)的细胞内浓度升高。除已知的抗氧化作用外,我们还证实 3-HK 可直接抑制铁蛋白自噬。它能上调铁蛋白水平并消耗活性铁,且该过程独立于 NRF2 或 AHR 31 。尽管 3-HK 在浓度高达 50 μM 时仅表现出微弱的 RTA 活性(参考文献 35 ),但我们发现,低至 5 μM 的 3-HK 即可上调铁蛋白水平并抑制铁死亡。这种保护作用在 FTH1 或 NCOA4 缺陷细胞中消失,证实了抑制铁蛋白自噬是其核心机制。鉴于铁蛋白自噬在释放溶酶体铁以触发铁死亡方面所起的作用 13 ,3-HK 介导的该过程抑制代表了 PAT 赋予铁死亡抵抗力的关键机制。
新出现的证据表明,代谢物不仅作为生物底物发挥作用,而且还作为关键的信号分子,调节细胞过程 [^43] 。例如,果糖-1,6-二磷酸和亮氨酸通过直接结合其调节因子来调节 AMPK 和 mTORC1 信号通路,这两个通路是控制代谢稳态的核心通路 44,45 。最近,有报道称ω-6 亚油酸可以调节 mTORC1 活性 [^46] 。类似地,一些色氨酸代谢物被认为是芳烃受体(AHR)的配体 47,48 。作为延伸,我们的研究表明,3-己糖胺(3-HK)作为铁蛋白自噬和铁稳态的内源性调节因子发挥作用。值得注意的是,细胞铁的可用性通过血红素生物合成影响色氨酸和犬尿氨酸的代谢,因为血红素是 IDO1 和 TDO2 的必需辅因子 49 。这表明铁稳态和 TRP 代谢之间存在双向调节回路,可能由 3-HK 介导。
癌症免疫疗法彻底改变了癌症治疗。然而,相当一部分患者,尤其是患有结直肠癌(CRC)和伴有腹膜转移的胃癌(GC)的患者,对免疫检查点抑制剂(ICB)的反应不佳 50, 51 。我们之前的研究表明,调节肿瘤微环境(TME)可以增强免疫疗法的疗效 52, 53, 54 。IDO1 曾是一个很有前景的靶点 55 ,但其抑制联合抗 PD-1 疗法在 III 期临床试验中失败 56 ,表明存在其他耐药机制。在本研究中,我们发现 IDO1 和 TDO2 在腹膜转移瘤(PAT)中均高表达,驱动犬尿氨酸(KYN)积累并赋予铁死亡抵抗力。由于铁死亡具有免疫原性,我们的研究结果提示,同时抑制 IDO1 和 TDO2 可能与免疫疗法产生协同作用,从而改善治疗效果。
总之,我们的研究揭示了 PAT 通过上调 3-HK 和抑制铁蛋白自噬来保护肿瘤细胞免于铁死亡并削弱免疫疗法的机制。这些发现加深了我们对 PAT 与抗肿瘤免疫之间机制联系的理解,并凸显了靶向 3-HK 介导的铁调控的治疗潜力。
方法#
伦理审批#
患者样本取自中山大学肿瘤防治中心(SYSUCC)。所有样本的采集均获得患者书面知情同意,并符合中山大学肿瘤防治中心医学伦理委员会制定的相关规定。本研究方案已获得中山大学肿瘤防治中心伦理委员会批准(B2024-759-01)。实验参与者的特征详见补充表 5。 所有动物实验均已获得中山大学实验动物伦理委员会批准(编号:L025504202205013),并符合《赫尔辛基宣言》的规定。肿瘤体积上限为 2000 mm³ 或体重的 20%,以先达到者为准。所有肿瘤均低于此上限。达到人道终点的动物立即实施安乐死,所有存活动物在研究结束后均实施安乐死。
细胞培养#
包括 293T、DLD1、HCT116、A549 和 CT26 在内的细胞系购自美国典型培养物保藏中心(ATCC)。MC38(小鼠结肠腺癌)细胞系购自 iCell Bioscience 公司。代谢物处理实验中使用透析胎牛血清(FBS;Thermo Fisher Scientific 公司)。常规培养中,细胞培养于添加 10% FBS(Wisent 公司)和 1%青霉素-链霉素(Gibco 公司)的 RPMI-1640 培养基或 Dulbecco 改良 Eagle 培养基(DMEM;Gibco 公司),并在 37℃、5% CO₂ 条件下培养。所有细胞在使用前均经支原体检测呈阴性,并通过短串联重复序列聚合酶链式反应(PCR)DNA 分型进行鉴定。
siRNA 转染和稳定细胞系构建#
寡核苷酸序列,包括引物、RNA 干扰和 CRISPR,详见补充表 7。 靶向人源和鼠源 KMO 和 KYNU 的 siRNA 由擎科生物(北京,中国)合成。siRNA 转染实验采用 Lipofectamine RNAiMAX 转染试剂(Invitrogen),并按照制造商的说明书进行操作。慢病毒颗粒的制备方法为:将 HEK293T 细胞(培养于 T25 培养瓶中)与包装质粒 psPAX2(2.8 μg)、包膜载体 pMD2.G(1.56 μg)和靶质粒(2 μg,包含小向导序列(sg) NCOA4、shSLC7A11、shGPX4 和 sgAHR)共转染,转染试剂为 X-tremeGENE HP(Roche),并按照制造商的说明书进行操作。 60 小时后,收集含有慢病毒的上清液,在 4℃下以 1800 g 离心 10 分钟,并用 0.45 µm 滤膜过滤。将六孔板中汇合度约为 70%的靶细胞用病毒上清液在聚凝胺(8 µg ml⁻¹ )存在下进行转导。24 小时后,更换病毒培养基,并开始嘌呤霉素筛选。为了进行克隆筛选,将细胞以每孔一个细胞的密度接种于 96 孔板中,并在含有 20% FBS 的培养基中培养 10 天。扩增源自单个细胞的克隆,并通过免疫印迹法进行验证。
脂肪基质制备#
为了制备人结直肠癌(CRC)肿瘤周围脂肪条件培养基(adipose-CM),将新鲜切除的包含邻近脂肪组织的标本立即转移至含有 5 ml 无血清 RPMI 1640 培养基的无菌试管中。用磷酸盐缓冲液(PBS)洗涤组织 5 次以去除残留血液。使用无菌手术刀片小心分离脂肪组织,随后再用 PBS 洗涤 3 次。将分离的脂肪组织样本置于含有添加 1%(v/v)青霉素-链霉素的无血清 RPMI 1640 培养基的 T25 培养瓶中,在 37℃、5% CO₂ 的加湿培养箱中培养 24 小时。孵育结束后,收集上清液,在 4℃下以 400 g 离心 10 分钟,然后用 0.22 μm 滤膜过滤,以去除细胞碎片和潜在的微生物污染物。对照培养基在相同条件下制备,但不添加脂肪组织,作为基线参考。
对于小鼠肿瘤周围脂肪条件培养基(PAT),从携带皮下 MC38 肿瘤的 C57BL/6J 小鼠的腹股沟白色脂肪组织(iWAT)区域收集 PAT。组织解剖、培养条件以及后续用于细胞实验的稀释步骤均与人脂肪组织的方法相同。在进行后续细胞处理之前,将脂肪条件培养基或对照培养基以 1:3 的比例用常规培养基(1640 或 DMEM,均含 10%胎牛血清)稀释。
对于经 IDO1/TDO 抑制剂处理的脂肪条件培养基(dipose-CM),将皮下接种 MC38 肿瘤的 C57BL/6J 小鼠用 epacadostat 和 LM10 治疗 7 天。从相应小鼠的腹股沟白色脂肪组织(iWAT)区域收集腹膜后脂肪组织(PAT)。组织解剖和后续稀释用于细胞实验的步骤与人脂肪组织的步骤相同,只是在培养条件下添加了 epacadostat 和 LM10。
DPPH 测定#
按照制造商的说明进行 1,1-二苯基-2-三硝基苯肼自由基(DPPH)测定。简而言之,将 DPPH 溶解于无水乙醇中,配制成 0.1 mM 的溶液。然后向 DPPH 溶液中加入不同浓度的犬尿氨酸(KYN)或 3-己基氨基己酸(3-HK),混合物在室温下孵育 30 分钟。计算 517 nm 处吸光度的降低值,该降低值是自由基清除作用的相对值,并以 PBS 对照组为基准。Trolox(20 μg ml⁻¹ )作为阳性对照。
胞质辅酶 Q10 测定#
使用线粒体分离试剂盒(Thermo 89874)获取细胞胞质组分。简而言之,将 3 × 10⁷个 细胞悬浮于线粒体分离试剂中,并在冰上用 Dounce 组织研磨器匀浆,然后在 4℃下以 700 g 离心 10 分钟。将上清液转移至新的离心管中,并在 4℃下以 12,000 g 离心 15 分钟分离胞质组分。使用 BCA 蛋白测定试剂盒测定蛋白浓度。根据制造商的说明,使用 CoQ10 ELISA 试剂盒(Cusabio,CSB E14081h)检测 CoQ10。
定量蛋白质组学分析#
定量蛋白质组学分析由武汉美特维生物科技有限公司完成。简而言之,用对照培养基或脂肪条件培养基(adipose-CM)处理的 MC38 细胞,使用由 8 M 尿素、1 mM 苯甲基磺酰氟和 2 mM EDTA 组成的裂解缓冲液进行裂解。细胞裂解液在冰上进行超声破碎 5 分钟,然后在 4℃下以 15,000 g 离心 10 分钟以去除不溶性碎片。收集上清液,并使用 BCA 蛋白定量试剂盒(Thermo Fisher Scientific)测定蛋白浓度。随后,将收集的蛋白样品用于蛋白水解脱盐和液相色谱-串联质谱(LC-MS/MS)分析。使用 DIA-NN(版本 1.8.1)在无谱库模式下处理原始数据非依赖性采集(DIA)-MS 数据。利用集成于 DIA-NN 中的深度学习算法进行光谱库构建和肽段鉴定。目标匹配采用包含 54,910 条序列的 UniProtKB 小鼠蛋白质组数据库(uniprotkb_proteome_UP000000589_mouse_54910_20240528.fasta)。启用运行间匹配(MBR)功能,直接从 DIA 数据构建光谱库,提高不同运行间的鉴定一致性。蛋白质和前体水平鉴定的错误发现率均控制在 3%~1%。定量分析基于剩余的高置信度鉴定结果。
脂质过氧化、亚铁离子和谷胱甘肽的测定#
为进行脂质过氧化分析,在处理前一天将细胞接种于六孔板中。在用指定化合物处理指定时间后,用胰蛋白酶消化收集细胞,并重悬于 200 μl 含有 5 μM C11-BODIPY 581/591(Invitrogen)的 PBS 缓冲液中。在 37 °C 孵育 30 分钟后,使用 Beckman 流式细胞仪在 488/510 nm 激发波长下检测脂质过氧化水平,并使用 FITC 通道检测荧光信号。数据采用 CytExpert 2.4 软件进行分析。
采用铁离子检测试剂盒(Invitrogen)并按照制造商说明书定量测定亚铁离子( Fe²⁺ )水平。或者,使用 FerroOrange 染料(Dojindo)评估细胞内 Fe²⁺ 水平,并通过共聚焦显微镜(LSM880,配备 Fast Airyscan,Carl Zeiss)进行观察,或使用 Beckman 流式细胞仪进行分析。此外,采用 GSH-Glo 谷胱甘肽检测试剂盒(Promega)并按照制造商说明书测定细胞内 GSH 含量。
细胞活力检测#
采用 CellTiter 96 AQueous One Solution 细胞增殖检测试剂盒 (MTS; Promega) 评估细胞活力。将细胞以每孔 2000 个细胞的密度接种于 96 孔透明底板中,培养基中添加或不添加指定代谢物。次日,用铁死亡诱导剂(包括 RSL-3 和 erastin)以及细胞死亡抑制剂(例如 liproxstatin)处理细胞。处理 48 小时后,向每孔(含 200 μl 培养基)中加入 20 μl MTS 试剂,并在 37 °C、5% CO₂ 气氛下孵育 1 小时。使用 Synergy 多功能酶标仪 (BioTek) 测量 490 nm 处的吸光度,并将细胞活力表示为相对于未处理对照组的相对值。
免疫印迹、免疫沉淀、免疫组化和免疫荧光分析#
按照先前报道的标准程序进行免疫印迹和 IP 分析 [^21] [^52] [^53] 。使用 RIPA 或 NP-40 裂解缓冲液从培养细胞或组织中提取蛋白质,并使用 BCA 蛋白质测定试剂盒(Thermo Fisher Scientific)定量蛋白质浓度。等量的蛋白质样品经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳 (SDS-PAGE) 分离后,使用相应的抗体进行免疫印迹分析,这些抗体包括:GPX4 (1:1000, ab125066, Abcam)、FTH1 (1:1000, 4393S, Cell Signaling Technology)、FTL (1:1000, ab109373, Abcam)、SLC7A11 (1:1000, 12691S, Cell Signaling Technology)、TFRC (1:1000, ab214039, Abcam)、FPN (1:1000, 26601-1-AP, Proteintech)、IRP2 (1:1000, 29916-1-AP, Proteintech)、微管蛋白 (1:1000, 2125S, Cell Signaling Technology) 和 NCOA4。 (1:1,000,ab314553,Abcam),KYNU(1:1,000,ab320833,Abcam),KMO(1:500,MAB8050,R&D Systems),AHR(1:1,000,ab309491,Abcam),NRF2(1:2,500,ab137550,Abcam)和β-肌动蛋白(1:1,000,4970S,Cell Signaling Technology)。
对于免疫沉淀分析,将细胞置于冰上,用含有蛋白酶抑制剂的裂解缓冲液(20 mM Tris,pH 7.5,150 mM NaCl 和 1% Triton X-100)裂解 10 分钟,然后在 4 °C 下以 12,000 g 离心 15 分钟。将上清液转移至新的离心管中,并与一抗(NCOA4,1:100,ab314553,Abcam)在 4 °C 下孵育过夜,随后在相同温度下与 Protein A/G 磁珠孵育 4 小时。之后使用磁力架收集磁珠,并弃去上清液。加入 1 ml 洗涤缓冲液(25 mM Tris,pH 7.5,150 mM NaCl 和 0.05% Tween-20)后,将磁珠充分重悬,然后用磁力架再次收集磁珠,并弃去上清液。重复此洗涤步骤两次。最后,将磁珠在 SDS-PAGE 上样缓冲液(50 mM Tris,pH 6.8,20 mM 二硫苏糖醇,1% SDS,10%甘油和 0.1%溴酚蓝)中煮沸。
免疫组化(IHC)按先前描述的方法进行 [^21] [^53] 。石蜡包埋的组织切片经二甲苯脱蜡,并用梯度乙醇溶液复水。在柠檬酸缓冲液(pH 6)中,于 121℃下进行 10 分钟的热介导抗原修复。修复后,切片在室温下冷却 1 小时,然后用 3% H 2 O 2 处理 10 分钟以阻断内源性过氧化物酶活性。随后,切片在室温下用 QuickBlock 封闭缓冲液(碧云天)封闭 30 分钟。之后,切片与抗 4-HNE 抗体(Abcam,货号 ab46545)以 1:100 的比例用抗体稀释液(Dako)稀释,并在 4℃下孵育过夜。用 PBS 洗涤 5 次后,将切片与 Dako REAL EnVision/HRP(兔/鼠)抗体在室温下孵育 45 分钟,最后用 Dako REAL DAB 显色。其他使用的主要抗体包括 FTH1(4393S,Cell Signaling Technology)、FTL(ab109373,Abcam)和 MDA(1:100,JAIMMD030,AdipoGen Life Sciences)。两位独立的病理学家对染色切片进行评估。通过将阳性染色肿瘤细胞的百分比(0-100%)乘以染色强度(0-3 级)计算综合组织学评分。免疫荧光染色按先前报道的方法进行 21 。
对于免疫荧光分析,MC38 和 DLD1 细胞按照标准流程进行固定和染色,使用针对 KYN(IS003,ImmuSmol)、NCOA4(ab314553,Abcam)和 FTH1(ab75973,Abcam)的一抗,随后与荧光染料标记的二抗孵育,并用 4′,6-二脒基-2-苯基吲哚 (DAPI) 进行复染。使用配备 Fast Airyscan(Carl Zeiss)的 LSM880 显微镜采集图像。
Duolink 原位 PLA#
采用 Duolink 原位 PLA 试剂盒(Sigma-Aldrich)进行 PLA 检测。简而言之,将 DLD1 和 MC38 细胞固定后,按照制造商的建议,与一抗(1:100 稀释)、二抗和 DAPI 孵育。使用 594 nm 荧光标记检测试剂盒检测阳性反应。只有当两个抗原之间的距离小于 40 nm 时,PLA+ 和 PLA- 探针之间的杂交才会产生荧光信号。使用配备 Fast Airyscan 的 LSM880(ZEISS)扫描电子显微镜获取细胞图像。
RNA 分离和定量 PCR 分析#
根据制造商说明,使用 TRIzol 试剂(Invitrogen)提取总 RNA。使用 PrimeScript RT Master Mix Kit(Takara)以 1 μg RNA 为模板合成互补 DNA (cDNA)。使用 GoTaq qPCR Master Mix(Promega)进行定量实时 PCR。基因表达水平以 β-actin 为内参进行标准化,并使用 2 -ΔΔCt 法计算相对定量值。
基于液相色谱-质谱联用技术的代谢组学分析#
根据先前描述的方法,并稍作修改 [^52] [^57] ,对全面的非靶向代谢物进行了分析。简而言之,将储存在−80 °C 的样品置于冰上解冻,并涡旋振荡 10 秒。亲水性和疏水性化合物的提取分别使用提取溶剂 A(乙腈:甲醇 = 1:4,v/v)或提取溶剂 B(甲基叔丁基醚:甲醇 = 3:1,v/v),每种溶剂均含有内标(IS)。样品提取物采用液相色谱-电喷雾电离(ESI)-串联质谱(LC-MS/MS)系统(UPLC,ExionLC AD;MS,QTRAP6500+系统)进行分析。使用配备 ESI Turbo IonSpray 接口的 QQQ-LIT 质谱仪 (QTRAP) 和 QTRAP LC-MS/MS 系统,在正负离子模式下运行,并由 Analyst 1.6.3 软件 (Sciex) 控制,采集线性离子阱 (LIT) 和三重四极杆 (QQQ) 扫描数据。根据每个时间段内洗脱的代谢物,监测一组特定的多反应监测 (MRM) 转换。
按照先前研究 58 所述的方法,通过离心法获得肿瘤间质液(TIF)。简而言之,将荷瘤小鼠安乐死,并在 2 分钟内迅速解剖肿瘤。切除的肿瘤称重,用生理盐水快速冲洗,并用滤纸吸干水分。整个预处理过程大约在 2 分钟内完成。然后将肿瘤置于装有 20 mm 尼龙网(Merck Millipore)的 50 ml 锥形管中,并在 4 °C 下以 106 g 离心 10 分钟。收集在锥形管中的 TIF 立即用液氮速冻,并储存在−80 °C 直至进一步分析。然后,取 50 μl 样品用 250 μl 甲醇提取,并向提取液中加入 10 μl 内标混合溶液(250 ng ml −1 )作为定量分析的内标。将提取物涡旋振荡 3 分钟,然后在−20 °C 下保存 30 分钟,于 4 °C 下以 12,000 转/分钟离心 10 分钟,收集 150 μl 上清液。将上清液再次于 4 °C 下以 12,000 转 / 分钟离心 5 分钟,取 100 μl 上清液,使用 LC-ESI-MS/MS 系统(UPLC,ExionLC AD;MS,QTRAP 6500+系统)进行分析。使用配备 ESI Turbo IonSpray 接口的 QTRAP 6500+ LC-MS/MS 系统(QTRAP 6500+ LC-MS/MS 系统)采集 LIT 和 QQQ 扫描数据,该系统可在正负离子模式下运行,并由 Analyst 1.6.3 软件(Sciex)控制。采用预设多反应监测(MRM)方法分析色氨酸(TRP)及其代谢物。数据采集使用 Analyst 1.6.3 软件(Sciex 公司)完成。所有代谢物的定量分析均使用 Multiquant 3.0.3 软件(Sciex 公司)进行。 在进一步优化去簇电压 (DP) 和碰撞能量 (CE) 后,设定了质谱仪参数,包括各个 MRM 转换的去簇电压 (DP) 和碰撞能量 (CE)。根据每个时间段内洗脱的代谢物,监测一组特定的 MRM 转换。所有代谢组学分析均由武汉美特维生物科技有限公司完成。
使用 HPG 的脉冲追踪分析#
HEK293T 和 MC38 细胞汇合度达到 80% 时,用预热的 PBS 洗涤两次,然后在添加 10% 透析 FBS 的 DMEM 培养基中进行甲硫氨酸饥饿处理 1 小时。饥饿处理后,向培养基中加入 2 mM L- 高丙炔基甘氨酸 (L-HPG) 进行 4 小时的脉冲标记。随后,细胞再次用预热的 PBS 洗涤两次,并更换为含 10% FBS 的 DMEM 培养基。在指定时间点(0、2、4、6、12 和 24 小时)收集细胞,并在冰上用含有蛋白酶抑制剂的裂解缓冲液(20 mM Tris,pH 7.5,150 mM NaCl 和 1% Triton X-100)裂解 10 分钟,然后在 4°C 下以 12,000 g 离心 15 分钟。将上清液转移至新的离心管中,并使用与 Protein A/G 磁珠偶联的抗 FTH1 抗体进行免疫沉淀(IP)。然后,根据制造商的方案(Click-&-Go Click Chemistry Reaction Buffer Kit),通过铜催化的点击反应,用生物素炔烃对 HPG 标记的 FTH1 蛋白进行生物素化。磁珠用洗涤缓冲液(25 mM Tris,pH 7.5,150 mM NaCl 和 0.05% Tween-20)洗涤三次,并在 SDS-PAGE 上样缓冲液中煮沸。使用 HRP 标记的抗生物素抗体,通过 Western blot 分析检测生物素化的 FTH1 蛋白。
体外下拉实验#
纯化的 Flag-NCOA4-fl 或 His-NCOA4 383–522 蛋白与指定代谢物(10 μM)预孵育,随后在 4 °C 下与纯化的铁蛋白在抗 Flag 磁珠或 Ni-NTA 琼脂糖珠存在下孵育过夜。磁珠用洗涤缓冲液洗涤六次,结合的蛋白用 SDS 上样缓冲液洗脱。洗脱的样品通过免疫印迹法进行分析。
SPR 检测#
使用配备 CM7 传感器芯片(GE Healthcare)的 Biacore T200 系统,在 25 °C 下评估 NCOA4 蛋白与代谢物(3-HK、 L -KYN 或 3-HAA)之间的结合亲和力。所有测量均重复三次。数据分析采用 Biacore T200 评估软件(版本 2.0),并按照制造商的说明进行操作。CM7 传感器芯片用 200 µM 1-乙基-3-(3-二甲氨基丙基)碳二亚胺和 50 µM N- 羟基琥珀酰亚胺 (NHS) 的混合溶液以 10 µl min⁻¹ 的流速激活 10 分钟。随后,将 30 µl 纯化的 NCOA4 蛋白(如上所述)预先用 150 µl 10 mM 乙酸钠缓冲液(pH 4.5)调节至 pH 4.5,并以 10 µl min⁻¹ 的流速注入流动池,持续 5 分钟,重复 3 个循环。封闭步骤使用 1 M 乙醇胺,流速为 10 µl min⁻¹, 持续 10 分钟。参考通道的制备方法与激活和封闭步骤相同,只是用 PBS 缓冲液(pH 4.0)代替蛋白溶液。两个流动池均用 PBS 缓冲液平衡。将 3-HK、L-KYN 和 3-HAA(浓度均为 1 mM)的储备液用 PBS 缓冲液进行系列稀释,浓度范围为 0 至 20 µM,并以 30 µl min⁻¹的 流速注入流动池,持续 180 秒。使用 Biacore T200 控制软件(版本 2.0)记录传感图,并从实验通道中减去参考池的响应值。通过将数据全局拟合到 1:1 Langmuir 结合模型,得出结合动力学和亲和力参数(缔合常数和解离常数)。
变得#
使用 EZ-Link Sulfo-NHS-LC-Biotinylation Kit(Thermo)对全长 NCOA4 (NCOA4-fl) 蛋白进行生物素化,随后使用 Zeba Spin 脱盐柱将其置换为 PBS 缓冲液。在 Octet Red 96 系统(ForteBio)上,于标准条件下(30 °C,1000 rpm 振荡)以 2.0 Hz 的信号采集频率进行生物发光成像 (BLI)。平衡 10 分钟后,分别使用 Ni-NTA 和 Super Streptavidin 生物传感器(Sartorius)将 His-NCOA 4383–522 或生物素化的 NCOA4-fl 蛋白固定在传感器尖端。然后引入一系列用 PBS 稀释的 3-HK 浓度,使其与固定化的蛋白结合。所有原始传感器图均进行基线校准,并通过将数据拟合到 1:1 结合模型来计算动力学参数。使用 Octet Analysis Studio 11.0 软件处理数据并生成曲线。
蛋白质表达、纯化和验证#
将编码 His 标签 NCOA4 的质粒 (pET28a-His-NCOA4 383–522 ) 转化至 大肠杆菌 BL21 (DE3) 感受态细胞中。在 30 °C 下用 0.5 mM 异丙基-β- D- 硫代半乳糖苷 (IPTG) 诱导蛋白表达 24 小时。收集细胞并超声破碎,然后用 Ni-NTA 树脂 (GenScript) 在 4 °C 下纯化 His 标签蛋白 4 小时。用含有 50 mM Tris-HCl (pH 8.0)、300 mM NaCl 和 20 mM 咪唑的缓冲液洗涤树脂,直至吸光度恢复至基线水平。最后,用相同缓冲液中的咪唑梯度 (0–250 mM) 进行洗脱。蛋白质经ÄKTA FPLC 系统(Cytiva)上的 Superdex 200 Increase 10/300 GL 柱进一步纯化,随后使用 Amicon Ultra-4 超滤离心管(Millipore)在 PBS 缓冲液中进行浓缩和脱盐。蛋白质浓度采用 BCA 蛋白定量试剂盒(Thermo Fisher Scientific)测定。
为了表达 Flag 标签蛋白,将 pcDNA3.1-Flag-NCOA4 质粒转染至 HEK293F 细胞。48 小时后,裂解细胞,并使用抗 Flag 磁珠对 Flag-NCOA4 蛋白进行免疫沉淀。磁珠用含有 136.89 mM NaCl、2.67 mM KCl、8.1 mM Na₂HPO₄ 、1.76 mM KH₂PO₄ 和 0.5% Tween- 20 的 洗涤缓冲液洗涤 6 次。结合的蛋白用含有 50 mM Tris-HCl(pH 7.4)、150 mM NaCl 和 300 μg / ml Flag 肽的洗脱缓冲液洗脱。随后去除 Flag 肽,并使用 Amicon Ultra-0.5 超滤离心管(Millipore)浓缩蛋白。使用 BCA 蛋白测定试剂盒再次测定蛋白浓度。
热位移分析#
收集细胞,并用液氮和室温水进行三次冻融循环裂解细胞。裂解液以 15,000 g 离心 15 分钟,取上清液。将所得裂解液分别与 PBS 或 3-HK(5 µM)在室温下孵育 60 分钟。通过将样品暴露于一系列递增的温度下 5 分钟来评估蛋白质的热稳定性。冷却至室温后,进行 Western blot 分析,以评估配体结合后蛋白质稳定性的变化。
抗体介导的 CD8 + T 细胞清除#
在 iWAT 模型中,为了清除 CD8 + T 细胞,对 C57BL/6J 小鼠进行六次腹腔注射,注射物为抗 CD8a 抗体(BioXCell)或同型对照抗体(BioXCell)。治疗方案包括:第 1 天注射 300 μg 初始剂量,随后在肿瘤植入后的第 4、8、12 和 16 天分别注射 200 μg,共注射五次。为了评估 CD8 + T 细胞清除的有效性,分别在第 3、10 和 18 天通过眼眶后静脉丛取血,并使用针对非重叠 CD8 表位的抗体(BioLegend)进行流式细胞术分析。
OT-1 CD8 + T 细胞的获取和过继转移模型#
将 OT-1 小鼠脾脏中的 OT-1 CD8 + T 细胞通过机械分离法分离,分离方法为:使用 40 μm 细胞筛在 6 cm 培养皿中进行细胞分离,然后用磁激活细胞分选缓冲液洗涤两次。离心后,将细胞沉淀重悬于红细胞裂解缓冲液(Sigma-Aldrich)中,孵育 5 分钟以裂解红细胞。纯化的 OT-1 CD8 + T 细胞随后在添加了 IL-2(10 ng ml -1 ,212-12,PeproTech)、T-Select H-2KαOVA 四聚体(Medical & Biological Laboratories)和β-巯基乙醇(100 mM,M3148,Sigma-Aldrich)的 DMEM 培养基中培养 3-5 天。在 iWAT 肿瘤模型的过继转移实验中,将 1 × 10⁶ 个 MC38-OVA 肿瘤细胞接种到 Rag2 −/− 小鼠体内。肿瘤移植 7 天后,通过尾静脉注射向这些小鼠全身性输注 1 × 10⁶个 OT-1 CD8 + T 细胞。
小鼠 PAT 样品制备和铬单细胞基因表达 Flex#
将 MC38 肿瘤细胞植入 C57BL/6 小鼠的腹股沟白色脂肪组织(iWAT)附近,使其生长至约 300–400 mm³ 。随后从四只小鼠中采集腹股沟脂肪组织(PAT)样本,并按照制造商的说明,使用 Chromium 单细胞基因表达 Flex 平台(10x Genomics)进行处理。该服务由广州源鑫生物科技有限公司提供。简而言之,在组织解离和细胞核分离后,按照 10x Genomics 细胞和细胞核固定方案( CG000478 )固定细胞核。使用 LUNA 双荧光细胞计数器(Logos Biosystems)间歇性地评估细胞核浓度和完整性。探针杂交后,根据 10x Genomics Chromium 固定 RNA 分析多重样本混合工作手册(修订版 B, CG000565 ),对带有唯一条形码的样本进行定量,并按等量细胞核进行混合。将混合的细胞核洗涤后,每个样本选取约 20,000 个细胞核,使用 Chip Q 将其分离到凝胶珠乳液 (GEM) 中。后续步骤包括 GEM 条形码标记、GEM 回收、cDNA 预扩增和文库构建,具体步骤参见用户指南 ( CG000527 )。文库在 Illumina NovaSeqX 平台上进行测序,采用双端双索引测序,每个样本的测序深度约为 3 亿条 reads,读长为 2 × 150 bp。使用 bcl2fastq (Illumina) 对测序文库进行解复用,并将 FASTQ 文件使用 Cell Ranger v7.1.0 多流程 (10x Genomics) 进行处理,比对至 GRCh38-2020-A 参考基因组。
PDX 型号#
PDX 模型的建立方法与之前描述的方法略有不同 [^59] 。新鲜切除的人类结直肠癌(CRC)标本在无菌条件下被解剖成 1-2 mm 3 的肿瘤碎片。每个 PDX 肿瘤碎片均通过手术植入 NOD-scid IL2rgamma (NSG)小鼠的腹腔白色脂肪组织(iWAT)中。当肿瘤体积达到 50-100 mm 3 时,将小鼠随机分配到四个治疗组之一:载体组、IKE 组(30 mg kg -1 ,腹腔注射,每日一次)、LM10 组(200 mg kg -1 ,口服,每日一次)、epacadostat 组(300 mg kg -1 ,口服,每日一次)或上述治疗的组合组。使用数字游标卡尺持续监测肿瘤生长,并追踪肿瘤体积随时间的变化。
实验动物#
雌性 OT-1、C57BL/6J 和 BALB/c 小鼠(6-8 周龄)、NSG 小鼠和 Rag1 -/- 小鼠(5-6 周龄)均购自吉姆制药科技公司(GemPharmaTech)。BALB/c 裸鼠购自北京维通利华实验动物技术有限公司。所有动物实验均经中山大学肿瘤防治中心实验动物伦理委员会批准。小鼠饲养于温度控制的 SPF 级动物房内,光照/黑暗周期为 12 小时。所有实验操作均按照中山大学肿瘤防治中心实验动物伦理委员会批准的研究方案(L025504202205013)进行。
小鼠肿瘤模型#
对于非脂肪组织和腹股沟白色脂肪组织(iWAT)肿瘤模型,将 MC38 细胞(2 × 10⁶ )、 DLD1 细胞(2 × 10⁶)或 CT26 细胞(1 × 10⁶ )悬浮于 100 μl PBS 中,皮下注射至 C57BL/6J、BALB/c 裸鼠或 BALB/c 小鼠的背部,以构建第一代细胞来源的异种移植瘤。当肿瘤体积达到 300–400 mm³ 时收集肿瘤,并将其切碎成 1–2 mm³ 的碎片。然后将这些细胞来源的异种移植瘤碎片在麻醉状态下皮下接种至指定小鼠的背部中部或腹股沟白色脂肪组织区域。当肿瘤体积达到 50–100 mm³ 时,将小鼠随机分配到不同的治疗组进行指定的治疗。使用游标卡尺常规测量肿瘤大小,并使用以下公式计算肿瘤体积:体积( mm³ )= 0.5 ×(长径 × 短径 ² )。
在体内铁死亡诱导模型中,将经 shNC(阴性对照)或 shGPX4(强力霉素诱导型)处理的 DLD1 细胞来源肿瘤植入 BALB/c 裸鼠的中背部或腹股沟白色脂肪组织(iWAT)区域。植入三天后,将小鼠随机分组,并在饮用水中添加强力霉素(1 mg ml⁻¹ ,HY-N0565,MedChemExpress)。同样,将 MC38 细胞来源肿瘤植入 C57BL/6J 小鼠的中背部或腹股沟白色脂肪组织(iWAT)区域。当肿瘤体积达到 50–100 mm³ 时,将小鼠随机分组,分别接受 IKE(30 mg kg⁻¹ ,腹腔注射,每日一次,S7242,Selleckchem)或抗 PD-1 抗体(每只小鼠 100 μg,BE0146,BioXCell)治疗。 IKE 的制备方法如下:首先配制浓度为 60 mg/ ml 的二甲基亚砜(DMSO)储备液,然后用 DMSO:蓖麻油(乙氧基化):生理盐水按 1:1:8 的比例稀释,得到工作液。对照组仅注射溶剂。每只小鼠腹腔注射 100 μg 抗 PD-1 抗体或 IgG,每 3 天一次,共注射 3 次。使用数字游标卡尺持续监测肿瘤生长情况,并追踪肿瘤体积随时间的变化。
对于采用 IDO/TDO 抑制剂给药的 iWAT 模型,TDO2 抑制剂 LM10(200 mg kg⁻¹ ,口服,HY-33298,MedChemExpress)和 IDO1 抑制剂 epacadostat(300 mg kg⁻¹ ,口服,HY-15689,MedChemExpress)悬浮于 0.5%羧甲基纤维素钠溶液中,每日经口灌胃给药。Lip-1(10 mg kg⁻¹ ,每日一次,HY-12726,MedChemExpress)于第 0 天开始腹腔注射给药。IKE 或抗 PD-1 的给药方案与上述相同。
在腹膜转移模型中,将 MC38 细胞(5 × 10⁵ )腹腔注射到小鼠体内。从细胞注射后第 0 天开始,腹腔注射 Lip-1(10 mg / kg,每日一次)。从细胞注射后第 3 天开始,通过灌胃给予 Epacadostat(300 mg/kg, 每日 一次)和 LM10(200 mg / kg,每日一次)。从第 7 天开始,每 3 天腹腔注射一次抗 PD-1 抗体(每只小鼠 100 μg),共注射三次。采用体内成像技术评估肿瘤负荷。
统计学和可重复性#
本研究未进行正式的功效分析来确定样本量。我们的样本量是根据既往研究 [^21] 中使用的样本量选择的。在实验和结果评估过程中,研究人员并未对分组情况进行盲法处理。在动物实验中,除非另有说明,小鼠均被随机分配到实验组。所有数据均纳入分析,未排除任何数据。数据以均值±标准差(SD)表示。每个实验均进行了三次独立的生物学重复。实验重复次数、 P 值和检验方法详见图表或图例。两组间的比较采用双侧非配对 t 检验或双侧配对 t 检验。≥3 个独立组间的两两比较采用单因素方差分析(ANOVA)和 Tukey 事后多重比较检验。对于肿瘤生长曲线组,两两比较采用双因素方差分析和 Tukey 事后多重比较检验。采用 Kaplan - Meier 法估计生存函数,并使用 log-rank 检验比较不同组的生存分布。统计分析使用 GraphPad 10.0 版软件进行。P 值小于 0.05 表示具有统计学意义。所有统计检验均为双侧检验。所有实验均重复至少三次(除非另有说明),且结果一致。
报告摘要#
有关研究设计的更多信息,请参阅本文链接的《 自然投资组合报告摘要》 。
数据可用性#
Details of the primer sequences, siRNA, short hairpin RNA and plasmids are provided in Supplementary Table 7. Detailed information on the antibodies used is listed in Supplementary Table 6. All other data supporting the findings of this study are available from the corresponding author on reasonable request. snRNA-seq data of PAT from MC38 iWAT tumours are available via Zenodo at https://doi.org/10.5281/zenodo.18426113 (ref. [^60]). Source data are provided with this paper.
代码可用性#
本研究未生成任何自定义代码或程序。本研究中使用的所有软件和软件包均在 “方法”部分 进行了详细描述。
参考#
致谢#
本研究得到了国家重点研发计划(项目编号:2022YFA1105300)、国家自然科学基金(项目编号:82341010、82372920、82403325 和 82403440)、深圳市三名工程(项目编号:SZSM202211017)、广东省基础与应用基础研究基金(项目编号:2023B1515040030)、昌平实验室(项目编号:2025C-12-02)、华南肿瘤学国家重点实验室开放基金(项目编号:HN2025-09)和中山大学肿瘤防治中心青年人才计划(项目编号:YTP-SYSUCC-0019)的资助。资助方未参与研究设计、数据收集和分析、发表决定或稿件撰写。
伦理声明#
利益冲突#
作者声明不存在利益冲突。
同行评审#
同行评审信息#
《自然细胞生物学》 感谢 Clay Semenkovich 和其他匿名审稿人对这项工作的同行评审所做出的贡献。
附加信息#
出版商声明: 施普林格·自然出版社对已出版地图中的管辖权主张和机构隶属关系保持中立。
扩展数据#
扩展数据图 1 PAT 赋予肿瘤铁死亡抵抗力。#
a 、 b , 体外 ( a )和 体内 ( b )强力霉素诱导的 GPX4 敲低 DLD1 细胞中 GPX4 蛋白水平的免疫印迹分析 。c ,BALB/c 裸鼠非脂肪组织或 iWAT 部位的 GPX4 敲低或对照 DLD1 肿瘤(每组 n=6 只小鼠) 。d ,BALB/c 裸鼠非脂肪组织或富含 WAT 的 DLD1 肿瘤模型中 4-HNE 和 MDA 染色(左)的代表性 IHC 图像以及 MDA 的相应 IHC 染色评分(右)(比例尺,50 μm)(比例尺,50 μm)。e 、 f , 体外 ( e )和 体内 ( f )强力霉素诱导的 SLC7A11 敲低 MC38 细胞中 SLC7A11 蛋白水平的免疫印迹分析。 g ,在非脂肪组织或腹腔内白色脂肪组织(iWAT)部位植入 SLC7A11 敲低或对照 MC38 细胞的 C57BL/6J 小鼠的生长曲线(左)和肿瘤重量(右)(每组 n=6 只小鼠) 。h , 经 IKE 或对照处理的 C57BL/6J 小鼠非脂肪组织或 iWAT 部位 MC38 肿瘤的生长曲线(左)和肿瘤重量(右)(每组 n=6 只小鼠)。i,经 IKE 或对照处理的 C57BL/6J 小鼠非脂肪组织或 iWAT 部位 MC38 肿瘤(每组 n=6 只小鼠)。 j ,图示为经 IKE 治疗后,C57BL/6J 小鼠 MC38 肿瘤中 4-HNE 和 MDA 染色(左)及其对应的 MDA 免疫组化染色评分(右)(比例尺,50 μm)。d 、 j 为 6 次独立实验。数据和误差线以平均值±标准 差 表示。P 值采用双因素方差分析、单因素方差分析或双尾非配对 t 检验计算。图( a 、 b 、 e 、 f )代表两次独立实验,结果相似。
扩展数据图 2 PAT 通过抑制肿瘤铁死亡降低免疫疗法的疗效。#
a 、 b ,C57BL/6J 小鼠非脂肪组织或 WAT 富集肿瘤模型经抗 CD8 抗体或同型对照治疗后的肿瘤生长曲线( a )和肿瘤重量( b )(每组 n=6 只小鼠)。c、 d , Rag1 -/ - 小鼠非脂肪组织或 WAT 富集肿瘤模型在植入后第 7 天接受 OT-1 小鼠活化 CD8 + T 细胞过继转移后的肿瘤生长曲线( c )和肿瘤重量( d )(每组 n=6 只小鼠)。e , C57BL/6J 小鼠非脂肪组织或 iWAT 部位的 MC38 肿瘤经抗 PD-1 抗体或 IgG 治疗后的肿瘤生长曲线(每组 n=6 只小鼠)。 f ,C57BL/6J 小鼠 MC38 肿瘤经抗 PD-1 抗体或 IgG 治疗后,非脂肪组织或富含白色脂肪组织的肿瘤模型中 4-HNE 和 MDA 染色(左图)及其对应的 MDA 染色评分(右图)的代表性 IHC 图像(n = 6,比例尺,50 μm) 。g 、 h ,GC 患者样本(I 期,n = 22;III+IV 期,n = 60)中 4-HNE( g )和丙二醛(MDA)( h )的代表性 IHC 图像(比例尺,200 μm 或 50 μm)及其染色评分(比例尺)。数据以箱线图形式呈现(箱体边界:第一四分位数至第三四分位数,上下横线:最小值至最大值,中线:中位数)。数据和误差线以平均值±标准差表示 。P 值采用双因素方差分析、单因素方差分析或双尾非配对学生 t 检验计算得出。
扩展数据图 3 PAT 赋予肿瘤铁死亡抵抗力,与维生素 E 和 CoQ10 无关。#
a ,HCT116 细胞经对照培养基或脂肪组织条件培养基(脂肪组织-CM)预处理 24 小时后,分别用 RSL-3 或 Liproxstatin-1(Lip)处理,检测其脂质过氧化水平。b , 小鼠脂肪组织来源的脂肪组织-CM 模型示意图 。c ,MC38 细胞经对照培养基或脂肪组织-CM 预处理 24 小时后,分别用 RSL-3 或 Lip 处理,检测其细胞活力(左)和脂质过氧化水平(右)。d、 e ,定量分析 C57BL/6J 小鼠非脂肪组织或 iWAT 部位 MC38 肿瘤中维生素 E( d )和胞质辅酶 Q10( e )的水平 。f ,蛋白质组学分析显示 , 与对照培养基相比,经脂肪组织-CM 预处理的 MC38 细胞中铁死亡相关蛋白的表达情况。 g 、 h ,MC38 细胞在对照培养基或脂肪条件培养基(fadiopose-CM)培养 24 小时后,细胞内谷胱甘肽(GSH)( b )和 Fe²⁺ ( c )水平的变化。i , FTH1 或 FTL 敲低以及对照 HCT116 和 DLD1 细胞中 FTH1 和 FTL 蛋白表达的免疫印迹分析。样本来自同一实验,但平行处理了不同的凝胶:一个凝胶用于微管蛋白和 FTH1,另一个凝胶用于 FTL。j , 用对照培养基或脂肪条件培养基预处理 24 小时后,FTH1/FTL 敲低或对照 HCT116 细胞的细胞活力,随后用 RSL-3 处理 。k ,FTH1/FTL 敲低或对照 HCT116 细胞在对照培养基或脂肪条件培养基培养 24 小时后,细胞内 Fe²⁺ 水平的代表性图像(左)和统计分析(右)。 l ,用对照培养基或脂肪-CM 预处理 24 小时后,用 RSL-3 处理 FTH1/FTL 敲低或对照 HCT116 细胞,测定其脂质过氧化水平。 m ,流程图展示了基于 mCherry 标记从 C57BL/6J 小鼠的非脂肪组织和白色脂肪组织(WAT)组中分选 MC38 细胞的过程 。n ,对用系列稀释的脂肪条件培养基(adipose-CM)处理的 MC38 细胞进行 FTH1 和 FTL 蛋白表达的免疫印迹分析。样本来自同一实验,但平行处理了不同的凝胶:一个凝胶用于β-肌动蛋白和 FTH1,另一个凝胶用于 FTL。o , 验证在转染了 SLC7A11、SLC7A5、SLC7A8 和 SLC1A5 siRNA 的 DLD1 细胞中 mRNA 敲低的效率 。p ,用阴性对照或相应 siRNA 转染的 DLD1 细胞用 KYN-FITC(异硫氰酸荧光素)处理 2 小时,通过流式细胞术测定细胞内 KYN-FITC 水平。 a 、 c 、 e 、 g 、 h 、 j - l 、 o 、 p 各有 3 个独立实验; f 有 5 个独立实验; d 有 6 个独立实验。图 (i 和 n) 代表两个结果相似的独立实验。数据和误差线以平均值 ± 标准差 (sd) 的形式呈现。P 值采用单因素方差分析 (ANOVA) 或双尾非配对 Student's t 检验计算。图 b 的示意图由 BioRender 生成;Huaiqiang, J. https://biorender.com/w2bx3gg (2026)。
扩展数据图 4 色氨酸-犬尿氨酸途径代谢物对铁死亡敏感性的影响。#
a ,色氨酸-犬尿氨酸代谢途径的示意图。b , 不同色氨酸代谢途径代谢物(20 μM)对 MC38 细胞铁死亡敏感性的影响。c 、 d ,在添加 25 μM 犬尿氨酸的 RPMI-1640 培养基中培养的 siNC 或 siKMO 转染的 MC38 细胞中 FTH1/FTL 蛋白( c )和细胞内 Fe²⁺ ( d )水平 。 样品来自同一实验,但平行处理了不同的凝胶:一个凝胶用于微管蛋白和 FTH1,另一个凝胶用于 FTL 和 KMO。e、 f ,在添加 25 μM 犬尿氨酸的 RPMI-1640 培养基中,用 DMSO 或 RSL3 处理的 siNC 或 siKMO 转染的 MC38 细胞的脂质过氧化水平( e )和细胞活力( f )。 g 、 h ,在添加了 25 μM KYN 的 RPMI-1640 培养基中培养的 siNC 或 siKYNU 转染的 MC38 细胞中 FTH1/FTL 蛋白( g )和细胞内 Fe2+( h )水平。样品来自同一实验,但平行处理了不同的凝胶:一个凝胶用于 Tubulin 和 FTH1,另一个凝胶用于 FTL 和 KYNU。i 、 j ,在添加了 25 μM KYN 的 RPMI-1640 培养基中,用 DMSO 或 RSL3 处理的 siNC 或 siKYNU 转染的 MC38 细胞的脂质过氧化水平( i )和细胞活力( j ) 。k ,用指定浓度的 3-HK 处理 MC38 细胞 16 小时后,FTH1 和 FTL 蛋白表达的免疫印迹分析。这些样品来自同一实验,但平行处理了不同的凝胶:一个凝胶用于微管蛋白和 FTH1,另一个用于 FTL。l ,在 RPMI-1640 培养基中用 3-HK(10 μM)处理 MC38 细胞 16 小时后,测量细胞内 Fe2 + 水平。 m 、 n ,MC38 细胞经 3-HK(10 μM)预孵育 24 小时后,再用 DMSO 或 RSL-3 处理,测定脂质过氧化水平( m )和细胞活力( n )。b、 d - f 、 h - j 、 l - n 均为 3 次独立实验。c 、 g 、 k 中的图像代表两次独立实验的结果,且结果相似。数据和误差线以平均值±标准差表示 。 所有比例尺均为 10 μm。使用单因素方差分析或双尾或非配对学生 t 检验计算 P 值。
扩展数据图 5 3-HK 介导的铁死亡抵抗与 NRF2 和 AHR 信号传导无关。#
a ,检测 MC38 细胞经 KYN 处理 24 小时后 FTH1 和 FTL 的 mRNA 水平。b , 采用高丙炔基甘氨酸(HPG)进行脉冲追踪实验,以评估 MC38 和 HEK-293T 细胞经 3-HK 处理后 FTH1 蛋白的稳定性。细胞先进行 1 小时的甲硫氨酸饥饿处理,随后进行 4 小时的 HPG 脉冲处理。在指定时间点收集细胞,并使用抗 FTH1 抗体对 FTH1 进行免疫沉淀。将 HPG 掺入的 FTH1 通过铜催化的点击反应与生物素炔烃进行生物素化,随后通过免疫印迹法进行检测。c , 检测 MC38 NC(阴性对照)或 NCOA4 敲除(KO)细胞经指定浓度 KYN 处理 24 小时后 FTH1 和 FTL 蛋白的表达情况。这些样本来自同一实验,但平行处理了不同的凝胶:一个凝胶用于检测 NCOA4、FTL 和 β-肌动蛋白,另一个 凝胶 用于检测 FTH1。d,MC38 NC 或 NCOA4 KO 细胞经载体或 KYN 处理 16 小时后,细胞内 Fe²⁺ 水平的代表性图像(比例尺,10 μm)和统计分析。e , MC38 sgNC 和 sgNCOA4 细胞经 3-HK 预孵育 16 小时后,再用 RSL-3 处理,检测其细胞活力。f , DLD1 NC 和 FTH1 KO 细胞中 FTH1 蛋白水平的免疫印迹分析 。g ,DLD1 sgNC 和 sgFTH1 细胞经 3-HK 预孵育 16 小时后,再用 RSL-3 处理,检测其细胞活力。 h ,通过测定稳定自由基 DPPH 在 517 nm 处的吸光度,测定 KYN 和 3-HK 在指定浓度下的无细胞自由基清除抗氧化活性。i , 对用指定浓度的 3-HK 处理的 MC38 NC 和 AHR KO 细胞进行 FTH1 蛋白水平的免疫印迹分析。 这些样本来自同一实验,但平行处理了不同的凝胶:一个凝胶用于检测 AHR 和 β-肌动蛋白,另一个用于检测 β-肌动蛋白和 FTH1,还有一个用于检测 FTL。j , 用 3-HK 处理的 DLD1 细胞中 SLC7A11 蛋白水平的免疫印迹分析 。k ,用指定浓度的 3-HK 处理的 A549 NC 或 SLC7A11 KO 细胞中 FTH1 和 FTL 蛋白表达的免疫印迹分析。这些样本来自同一实验,但平行处理了不同的凝胶:一个凝胶用于检测 SLC7A11 和 FTH1,另一个用于检测 β-肌动蛋白和 FTL。l , HCT116 NC 和 NRF2 KO 细胞中 Nrf2 和 FTH1 蛋白表达的免疫印迹分析 。m ,用 3-HK 处理的 DLD1 细胞中膜定位的 CD44 蛋白水平。 n ,对经指定浓度 3-HK 处理 24 小时的 DLD1 对照组和 CD44 敲低细胞进行 FTH1 蛋白表达的免疫印迹分析。图 a 、 d 、 e 、 g 、 h 为 3 次独立实验的结果。图 b 、 c 、 f 、 i - l 和 n 中的图像代表两次独立实验的结果,且两次实验结果相似。数据和误差线以平均值 ± 标准差 (sd) 的形式呈现。采用单因素方差分析计算 P 值。
扩展数据图 6 3-HK 对 NCOA4 和 FTH1 之间相互作用的影响。#
a ,通过免疫荧光检测 MC38 细胞中内源性 NCOA4 和 FTH1 的共定位,分别在有或无 3-HK(10 μM)处理的情况下进行(比例尺:20 μm 或 5 μm);共定位信号强度的定量结果如图所示(右图) 。b ,通过免疫共沉淀(co-IP)检测 3-HK 处理的 MC38 细胞中 FTH1 和 NCOA4 的相互作用。样本来自同一实验,但平行处理了不同的凝胶:一个用于免疫沉淀 样本 ,另一个用于输入样本。c,DLD1 细胞中内源性 NCOA4 和生物素标记的 3-HK 的共定位(比例尺:20 μm);共定位信号强度的定量结果如图所示(右图)。d , 使用全长 NCOA4 和系列 3-HK 进行生物层干涉(BLI)分析(上图)。使用稳态亲和力模型计算 NCOA4 对 3-HK 的解离常数(KD 值)(下图)。 e ,采用表面等离子共振(SPR)技术对 NCOA4 383-522 和 3-HK 系列化合物进行检测(上图)。利用稳态亲和力模型计算 NCOA4 383-522 对 3-HK 的 KD 值(下图) 。f ,采用生物发光成像(BLI)技术对 NCOA4 383-522 和 3-HK 系列化合物进行检测(上图)。利用稳态亲和力模型计算 NCOA4 383-522 对 3-HK 的 KD 值(下图)。图 b 中的图像代表了两次独立实验的结果,两次实验结果相似。
扩展数据图 7 双重 IDO1/TDO2 抑制使 PAT 相关肿瘤对铁死亡和免疫疗法敏感。#
a - c ,将携带 WAT 驻留 MC38 肿瘤的 C57BL/6 小鼠在植入后第 6 天接受 IDO/TDO 抑制剂治疗,并在治疗 10 天后收集组织。采用 LC-MS 法测定肿瘤周围脂肪组织中的犬尿氨酸( a )和肿瘤中的 3-HK( b )含量;检测肿瘤中的 FTH1、FTL 和 NCOA4 蛋白水平( c )。这些样本来自同一实验,但平行处理了不同的凝胶:一个凝胶用于 NCOA4、FTH1 和β-肌动蛋白的检测,另一个凝胶用于 FTL 的检测。d , 小鼠实验流程示意图,显示了与图 6a、b 相关的给药剂量和治疗时间线 。e, 小鼠实验流程示意图,显示了与图 6c、d 相关的给药剂量和治疗时间线。图 6f 为小鼠实验流程示意图,展示了与图 6e、 f 相关的给药剂量和治疗时间线。图 6g 为小鼠实验流程示意图,展示了与图 6g、 h 相关的给药剂量和治疗时间线。图 6h 为小鼠实验流程示意图,展示了与图 6i、j 相关的给药剂量和治疗时间线。图 6i 为小鼠实验流程示意图,展示了与图 6k 相关的给药剂量和治疗时间线。图 6j 为小鼠实验流程示意图,展示了与图 6l、m 相关的给药剂量和治疗时间线。图 c 中的图像代表了两个独立实验,结果相似。数据和误差线以平均值 ± 标准差 (sd) 的形式呈现。采用双侧学生 t 检验计算 P 值。
补充信息#
报告摘要(下载 PDF)#
补充表 1(下载 XLSX 文件)#
与图 2 相关的定量蛋白质组学数据。
补充表 2(下载 XLSX 文件)#
与图 3 相关的定量代谢组学数据。
补充表 3(下载 XLSX 文件)#
脂肪细胞条件培养基中犬尿氨酸浓度的定量数据。
补充表 4(下载 XLSX 文件)#
snRNA-seq 分析中鉴定出的细胞簇的标记基因(排名靠前),与图 3 相关。
补充表 5(下载 PDF)#
患者的临床特征。
补充表 6(下载 XLSX 文件)#
本研究中使用的抗体和试剂。
补充表 7(下载 XLSX 文件)#
本研究中使用的引物和寡核苷酸列表。
源数据#
原始数据图 1(下载 XLSX 文件)#
图 1 的统计来源数据。
源数据图 2(下载 XLSX 文件)#
图 2 的统计来源数据。
源数据图 3(下载 XLSX 文件)#
图 3 的统计来源数据。
源数据图 4(下载 XLSX 文件)#
图 4 的统计来源数据。
源数据图 5(下载 XLSX 文件)#
图 5 的统计来源数据。
源数据图 6(下载 XLSX 文件)#
图 6 的统计来源数据。
源数据图 7(下载 XLSX 文件)#
图 7 的统计来源数据。
源数据 扩展数据 图 1(下载 XLSX)#
扩展数据图 1 的统计来源数据。
源数据 扩展数据 图 2(下载 XLSX)#
扩展数据图 2 的统计来源数据。
源数据 扩展数据 图 3(下载 XLSX)#
扩展数据图 3 的统计来源数据。
源数据 扩展数据 图 4(下载 XLSX)#
扩展数据图 4 的统计来源数据。
源数据 扩展数据 图 5(下载 XLSX)#
扩展数据图 5 的统计来源数据。
源数据 扩展数据 图 6(下载 XLSX)#
扩展数据图 6 的统计来源数据。
源数据 扩展数据 图 7(下载 XLSX)#
扩展数据图 7 的统计来源数据。
源数据 扩展数据 图 8(下载 PDF)#
所有数据和扩展数据图均提供未裁剪的印迹图。
权利和许可#
开放获取: 本文根据知识共享署名-非商业性使用-禁止演绎 4.0 国际许可协议授权,允许在任何媒介或格式下进行任何非商业性使用、分享、分发和复制,但必须注明原作者和来源,提供指向知识共享许可协议的链接,并说明您是否修改了许可材料。根据本许可协议,您无权分享改编自本文或其任何部分的素材。除非另有说明,本文中的图像或其他第三方素材均包含在本文的知识共享许可协议中。如果素材未包含在本文的知识共享许可协议中,且您的预期用途不符合法律法规规定或超出许可范围,则您需要直接从版权所有者处获得许可。如需查看本许可协议的副本,请访问 http://creativecommons.org/licenses/by-nc-nd/4.0/ 。
[^1]: Haynes, NM, Chadwick, TB & Parker, BS 转移级联中免疫逃逸机制的复杂性。Nat . Immunol. 25, 1793–1808 (2024)。
Article CAS PubMed Google Scholar
[^2]: Brown, KA & Scherer, PE 脂肪组织与癌症的最新进展。 内分泌评论 44, 961–974 (2023)。
Article CAS PubMed PubMed Central Google Scholar
[^3]: Quail, DF & Dannenberg, AJ 肥胖脂肪组织微环境在癌症发生发展中的作用。Nat . Rev. Endocrinol. 15, 139–154 (2019)。
Article PubMed PubMed Central Google Scholar
[^4]: Ahn, H. 等。FDG PET/CT 中肿瘤周围脂肪组织影像特征对结直肠癌患者预后的意义。Eur . J. Radiol. 145, 110047 (2021)。
[^5]: Nieman, KM 等。脂肪细胞促进卵巢癌转移并为肿瘤快速生长提供能量。Nat . Med. 17, 1498–1503 (2011)。
Article CAS PubMed PubMed Central Google Scholar
[^6]: Wei, G. 等。邻近脂肪细胞的产热活性促进 ccRCC 的进展并损害抗肿瘤治疗效果。Cell Metab. 33, 2021–2039 (2021)。
Article CAS PubMed Google Scholar
[^7]: Dong, K. 等。产热脂肪细胞与癌细胞之间的代谢串扰:功能障碍和治疗。Curr . Opin. Pharmacol. 68, 102322 (2023)。
Article CAS PubMed Google Scholar
[^8]: Ladanyi, A. 等。脂肪细胞诱导的 CD36 表达驱动卵巢癌进展和转移。 癌基因 37, 2285–2301 (2018)。
Article CAS PubMed PubMed Central Google Scholar
[^9]: Di Franco, S. 等。脂肪干细胞微环境重编程结直肠癌干细胞转移机制。Nat . Commun. 12, 5006 (2021)。
Article PubMed PubMed Central Google Scholar
[^10]: Jiang, X., Stockwell, BR & Conrad, M. 铁死亡:机制、生物学和在疾病中的作用。Nat . Rev. Mol. Cell Biol. 22, 266–282 (2021)。
Article PubMed PubMed Central Google Scholar
[^11]: Zhang, YY, Han, Y., Li, WN, Xu, RH & Ju, HQ. 肿瘤铁稳态与免疫调节。 药理学趋势 45, 145–156 (2024)。
[^12]: Galy, B.、Conrad, M. 和 Muckenthaler, M. 控制细胞和系统铁稳态的机制。Nat . Rev. Mol. Cell Biol. 25, 133–155 (2024)。
Article CAS PubMed Google Scholar
[^13]: Cañeque, T. 等。溶酶体铁的激活触发癌症中的铁死亡。Nature 642, 492–500 (2025)。
[^14]: Saimoto, Y. 等。溶酶体脂质过氧化通过溶酶体膜通透性促进铁死亡的诱导。Nat . Commun. 16, 3554 (2025)。
Article CAS PubMed PubMed Central Google Scholar
[^15]: Zhou, H. 等。NCOA4 介导的铁蛋白自噬参与电离辐射诱导的肠上皮细胞铁死亡。Redox Biol. 55, 102413 (2022)。
Article CAS PubMed PubMed Central Google Scholar
[^16]: Li, K. 等。TRIM7 调节胶质母细胞瘤细胞中 NCOA4 介导的铁蛋白自噬和铁死亡。Redox Biol. 56, 102451 (2022)。
Article CAS PubMed PubMed Central Google Scholar
[^17]: Liu, Z. 等。E3 泛素连接酶 DTX2 通过抑制 NCOA4 介导的铁蛋白自噬促进非小细胞肺癌的铁死亡抵抗。 药物耐药性更新 77, 101154 (2024)。
Article CAS PubMed Google Scholar
[^18]: Fang, Y. 等。通过破坏 NCOA4–FTH1 相互作用抑制铁死亡:一种新的作用机制。ACS Cent Sci 7, 980–989 (2021)。
Article CAS PubMed PubMed Central Google Scholar
[^19]: Efimova, I. 等。用早期铁死亡癌细胞进行疫苗接种可诱导有效的抗肿瘤免疫。J . Immunother. Cancer 8, e001369 (2020)。
Article PubMed PubMed Central Google Scholar
[^20]: Bell, HN, Stockwell, BR & Zou, W. 理清铁死亡在免疫中的作用。 免疫 57, 941–956 (2024)。
Article CAS PubMed PubMed Central Google Scholar
[^21]: Han, Y. 等。IL-1β 相关 NNT 乙酰化协调铁硫簇的维持和癌症免疫治疗耐药性。Mol . Cell 83, 1887–1902 (2023)。
Article CAS PubMed Google Scholar
[^22]: Iwamoto, H. 等。癌症脂质代谢赋予抗血管生成药物耐药性。 细胞代谢 28, 104–117 (2018)。
Article CAS PubMed Google Scholar
[^23]: Yang, WS 等。GPX4 对铁死亡癌细胞死亡 的调控。Cell 156, 317–331 (2014)。
Article CAS PubMed PubMed Central Google Scholar
[^24]: Koppula, P.、Zhuang, L. 和 Gan, B. 胱氨酸转运蛋白 SLC7A11/xCT 在癌症中的作用:铁死亡、营养依赖性和癌症治疗。 蛋白质细胞 12, 599–620 (2021)。
Article CAS PubMed Google Scholar
[^25]: Calhoon, D. 等。糖胺聚糖驱动的脂蛋白摄取可保护肿瘤免受铁死亡。Nature 644, 799–808 (2025)。
Article CAS PubMed PubMed Central Google Scholar
[^26]: Bersuker, K. 等。辅酶 Q 氧化还原酶 FSP1 与 GPX4 平行作用以抑制铁死亡。Nature 575 , 688–692 (2019)。
Article CAS PubMed PubMed Central Google Scholar
[^27]: Mukherjee, A.、Bilecz, AJ 和 Lengyel, E. 脂肪细胞微环境与癌症。 癌症转移评论 41, 575–587 (2022)。
Article CAS PubMed Google Scholar
[^28]: Mukherjee, A. 等。脂肪细胞通过将葡萄糖转向甘油-3-磷酸来重编程癌细胞代谢,从而促进转移。Nat . Metab. 5, 1563–1577 (2023)。
Article CAS PubMed PubMed Central Google Scholar
[^29]: Luke, JJ 等。吲哚胺 2,3-双加氧酶 1 抑制剂 linrodostat 甲磺酸盐联合 nivolumab 或 nivolumab 和 ipilimumab 治疗晚期实体瘤或血液系统恶性肿瘤的 1/2 期研究。Clin . Cancer Res. 31, 2134–2144 (2025)。
Article CAS PubMed Google Scholar
[^30]: Zhou, L. 等。肿瘤细胞释放的犬尿氨酸通过激活 AhR-RUNX1 使癌症患者的 MEP 分化偏向巨核细胞。Nat . Immunol. 24, 2042–2052 (2023)。
Article CAS PubMed PubMed Central Google Scholar
[^31]: Fiore, A. 等。SLC7A11 介导的犬尿氨酸输入可传播抗铁死亡信号。Mol . Cell 82, 920–932 (2022)。
Article CAS PubMed PubMed Central Google Scholar
[^32]: Sinclair, LV, Neyens, D., Ramsay, G., Taylor, PM & Cantrell, DA 单细胞分析犬尿氨酸和 T 细胞中的 L 系统氨基酸转运。Nat . Commun. 9, 1981 (2018)。
Article PubMed PubMed Central Google Scholar
[^33]: Wang, W. & Zou, W. 氨基酸及其转运体在 T 细胞免疫和癌症治疗中的作用。Mol . Cell 80, 384–395 (2020)。
Article CAS PubMed PubMed Central Google Scholar
[^34]: Santana-Codina, N. 等。NCOA4 介导的铁蛋白自噬通过维持铁硫簇蛋白的铁生物利用度而成为胰腺癌的依赖性。Cancer Discov. 12, 2180–2197 (2022)。
Article CAS PubMed PubMed Central Google Scholar
[^35]: Liu, D. 等。色氨酸代谢作为一种新的抗铁死亡途径介导肿瘤生长。Adv . Sci. 10, e2204006 (2023)。
[^36]: Hoelzgen, F. 等。细胞内铁蛋白降解调控的结构基础。Nat . Commun. 15, 3802 (2024)。
Article CAS PubMed PubMed Central Google Scholar
[^37]: Wang, W. 等。CD8 + T 细胞在癌症免疫治疗期间调节肿瘤铁死亡。Nature 569, 270–274 (2019)。
Article CAS PubMed PubMed Central Google Scholar
[^38]: Badimon, L.、Oñate, B. 和 Vilahur, G. 脂肪来源间充质干细胞及其在缺血性心脏病中的修复潜力。 西班牙心脏病学杂志(英文版) 68, 599–611 (2015)。
[^39]: Lengyel, E.、Makowski, L.、DiGiovanni, J. 和 Kolonin, MG. 癌症与脂肪有关:脂肪组织和肿瘤之间的相互作用。Trends Cancer 4, 374–384 (2018)。
Article CAS PubMed PubMed Central Google Scholar
[^40]: Mittenbühler, MJ 等。细胞外液的分离揭示了肌肉和脂肪组织中新的分泌型生物活性蛋白。Cell Metab. 35, 535–549 (2023)。
Article PubMed PubMed Central Google Scholar
[^41]: Zhao, C. 等。脂肪细胞衍生的谷胱甘肽通过调节 SCARB2–ARF1–mTORC1 复合物促进肥胖相关乳腺癌。 细胞代谢 37, 692–707 (2025)。
Article CAS PubMed Google Scholar
[^42]: 谢毅等。乳腺脂肪细胞保护三阴性乳腺癌细胞免受铁死亡。 血液肿瘤学杂志 15, 72 (2022)。
Article CAS PubMed PubMed Central Google Scholar
[^43]: Baker, SA & Rutter, J.代谢物作为信号分子。Nat . Rev. Mol. Cell Biol. 24, 355–374 (2023)。
Article CAS PubMed Google Scholar
[^44]: Zhang, CS 等。果糖-1,6-二磷酸和醛缩酶介导 AMPK 的葡萄糖感知。Nature 548, 112–116 (2017)。
Article CAS PubMed PubMed Central Google Scholar
[^45]: Chen, J. 等。SAR1B 感知亮氨酸水平以调节 mTORC1 信号传导。Nature 596, 281–284 (2021)。
Article CAS PubMed Google Scholar
[^46]: Koundouros, N. 等。通过 FABP5–mTORC1 信号直接感知膳食中 的 ω-6 亚油酸。Science 387, eadm9805 (2025)。
Article CAS PubMed Google Scholar
[^47]: Cui, W. 等。肠道微生物代谢物通过抑制铁死亡促进结直肠癌的发展。 自然细胞生物学 26, 124–137 (2024)。
Article CAS PubMed Google Scholar
[^48]: Li, M. 等。肠道微生物代谢产物吲哚-3-乙酸通过粘蛋白硫酸化维持肠道上皮稳态。 肠道微生物 16, 2377576 (2024)。
Article PubMed PubMed Central Google Scholar
[^49]: Shin, I., Wang, Y. & Liu, A. 血红素依赖性芳香族加氧酶超家族的新机制。 美国国家科学院院刊 118, e2106561118 (2021)。
Article CAS PubMed PubMed Central Google Scholar
[^50]: Kang, YK 等。Nivolumab 联合化疗与安慰剂联合化疗治疗 HER2 阴性、未经治疗、不可切除的晚期或复发性胃癌或胃食管交界处癌患者(ATTRACTION-4):一项随机、多中心、双盲、安慰剂对照的 3 期试验。Lancet Oncol. 23, 234–247 (2022)。
Article CAS PubMed Google Scholar
[^51]: Nair, KG, Kamath, SD, Chowattukunnel, N. & Krishnamurthi, SS 局部晚期结肠癌的术前策略。Curr . Treat. Options Oncol. 25, 376–388 (2024)。
Article PubMed PubMed Central Google Scholar
[^52]: Li, T. 等。蛋氨酸缺乏通过改变免疫检查点转录本的 m6A 甲基化促进抗肿瘤免疫。Gut 72 , 501–511 (2023)。
Article CAS PubMed Google Scholar
[^53]: Li, JJ 等。肝脏微环境协调 FGL1 介导的免疫逃逸和转移性结直肠癌的进展。Nat . Commun. 14, 6690 (2023)。
Article CAS PubMed PubMed Central Google Scholar
[^54]: Wang, F. 等。联合抗 PD-1、HDAC 抑制剂和抗 VEGF 治疗 MSS/pMMR 结直肠癌:一项随机 2 期试验。Nat . Med. 30, 1035–1043 (2024)。
Article CAS PubMed Google Scholar
[^55]: Kraehenbuehl, L., Weng, CH, Eghbali, S., Wolchok, JD & Merghoub, T. 通过靶向新兴免疫调节通路增强癌症免疫疗法。Nat . Rev. Clin. Oncol. 19, 37–50 (2022)。
Article CAS PubMed Google Scholar
[^56]: Long, GV 等。Epacadostat 加 pembrolizumab 与安慰剂加 pembrolizumab 治疗不可切除或转移性黑色素瘤患者的疗效比较 (ECHO-301/KEYNOTE-252):一项 3 期随机双盲研究。Lancet Oncol. 20, 1083–1097 (2019)。
Article CAS PubMed Google Scholar
[^57]: Cai, ZR 等. 利用机器学习构建外泌体非编码 RNA 特征以实现胃癌患者的无创早期检测:一项多队列研究. Gut 74, 884–893 (2025)。
Article CAS PubMed PubMed Central Google Scholar
[^58]: Chen, S. 等。肿瘤相关巨噬细胞通过 Kir2.1 受肿瘤内高钾的影响而形成。 细胞代谢。34 , 1843–1859 (2022)。
Article CAS PubMed Google Scholar
[^59]: Wang, Y. 等。抑制脂肪酸分解代谢可增强奥沙利铂化疗在胃肠道癌症中的疗效。Cancer Lett. 473, 74–89 (2020)。
Article CAS PubMed Google Scholar
[^60]: Zhang, Y. Data for ‘Peritumoral adipose tissue promotes ferroptosis resistance by 3-hydroxykynurenine-mediated suppression of ferritinophagy’. Zenodo https://doi.org/10.5281/zenodo.18426113 (2026).